Естественные науки
Страница 8 из 67.
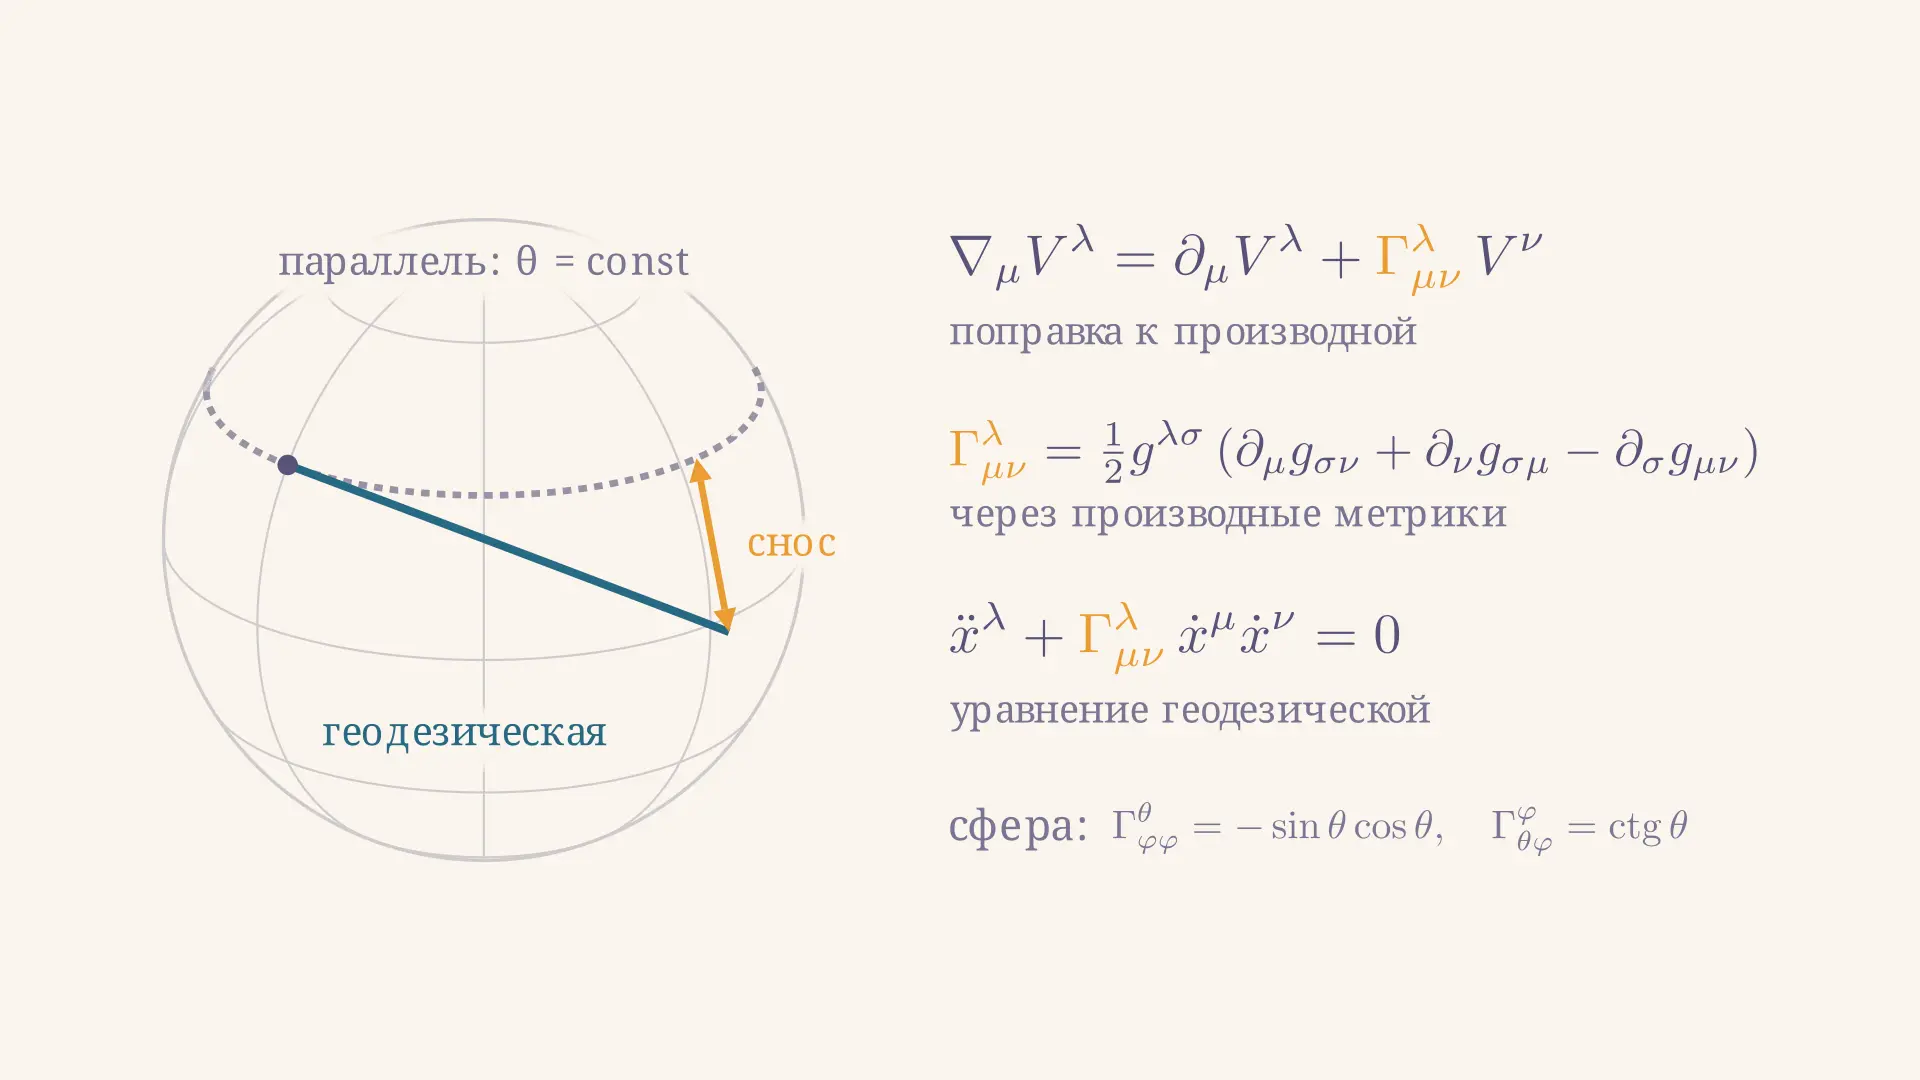
Символы Кристоффеля: формула и геодезические
Символы Кристоффеля простыми словами: зачем производной вектора поправка, формула через производные метрики, почему это не тензор, уравнение геодезической и расчёт для сферы.
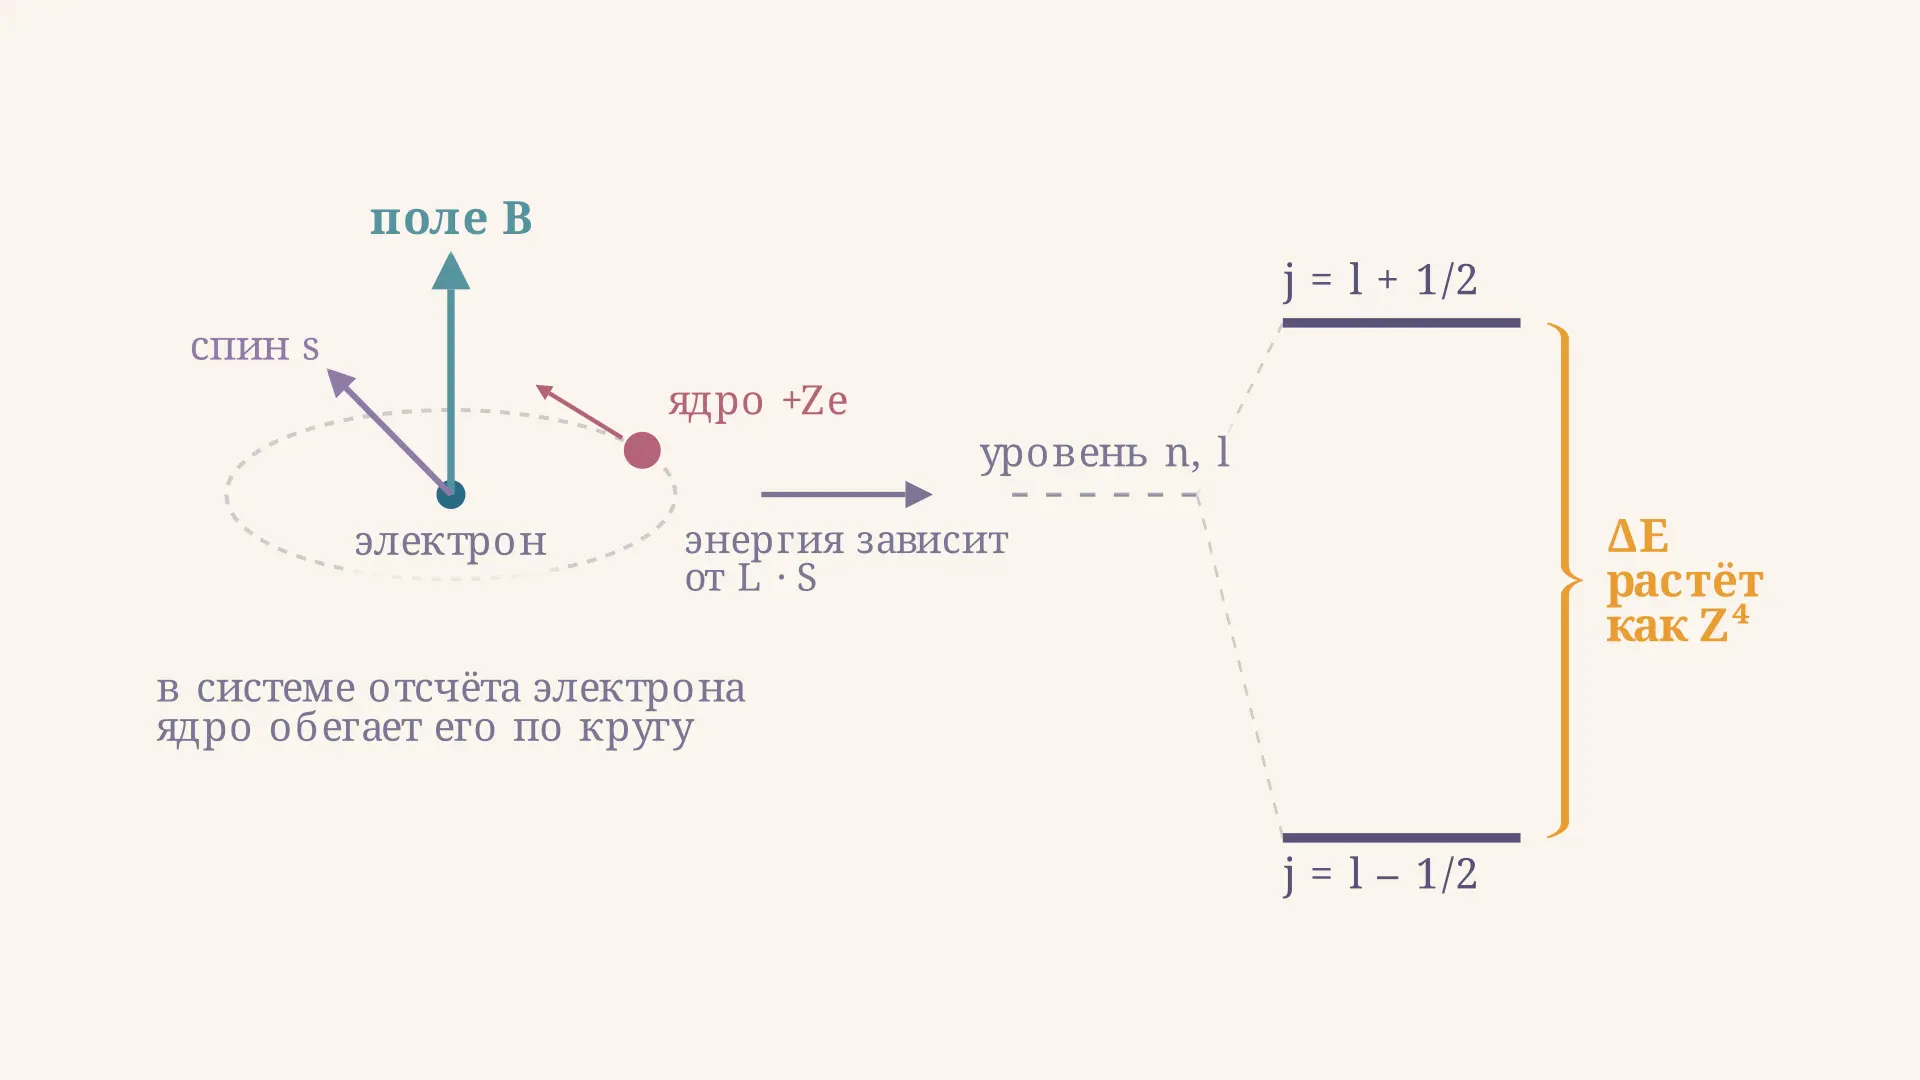
Спин-орбитальное взаимодействие: тонкая структура
Спин-орбитальное взаимодействие: откуда в атоме берётся магнитное поле, почему j равно l плюс минус 1/2, как посчитать расщепление уровня, дублет натрия и рост по четвёртой степени заряда.
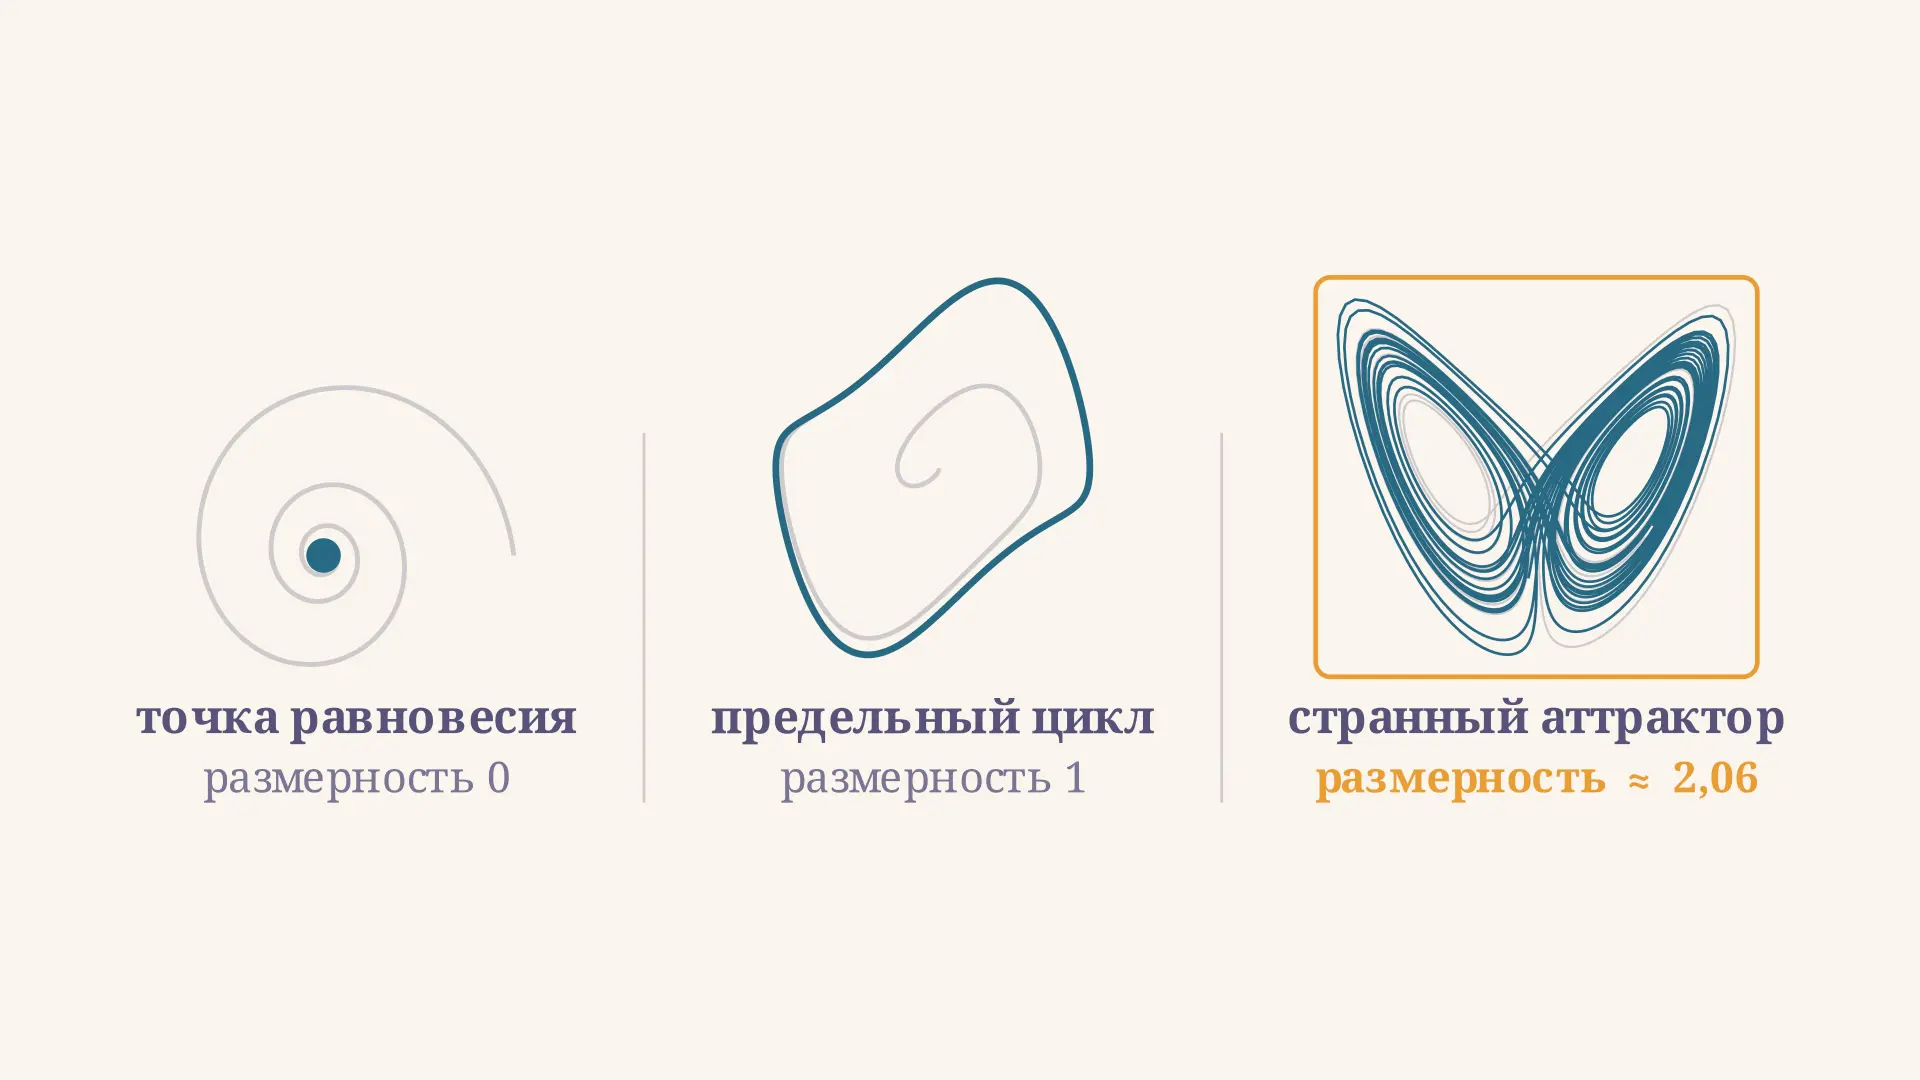
Странный аттрактор: хаос Лоренца и дробная размерность
Что такое странный аттрактор: чем он отличается от точки равновесия и предельного цикла, как устроен аттрактор Лоренца, откуда берутся показатель Ляпунова и дробная размерность.
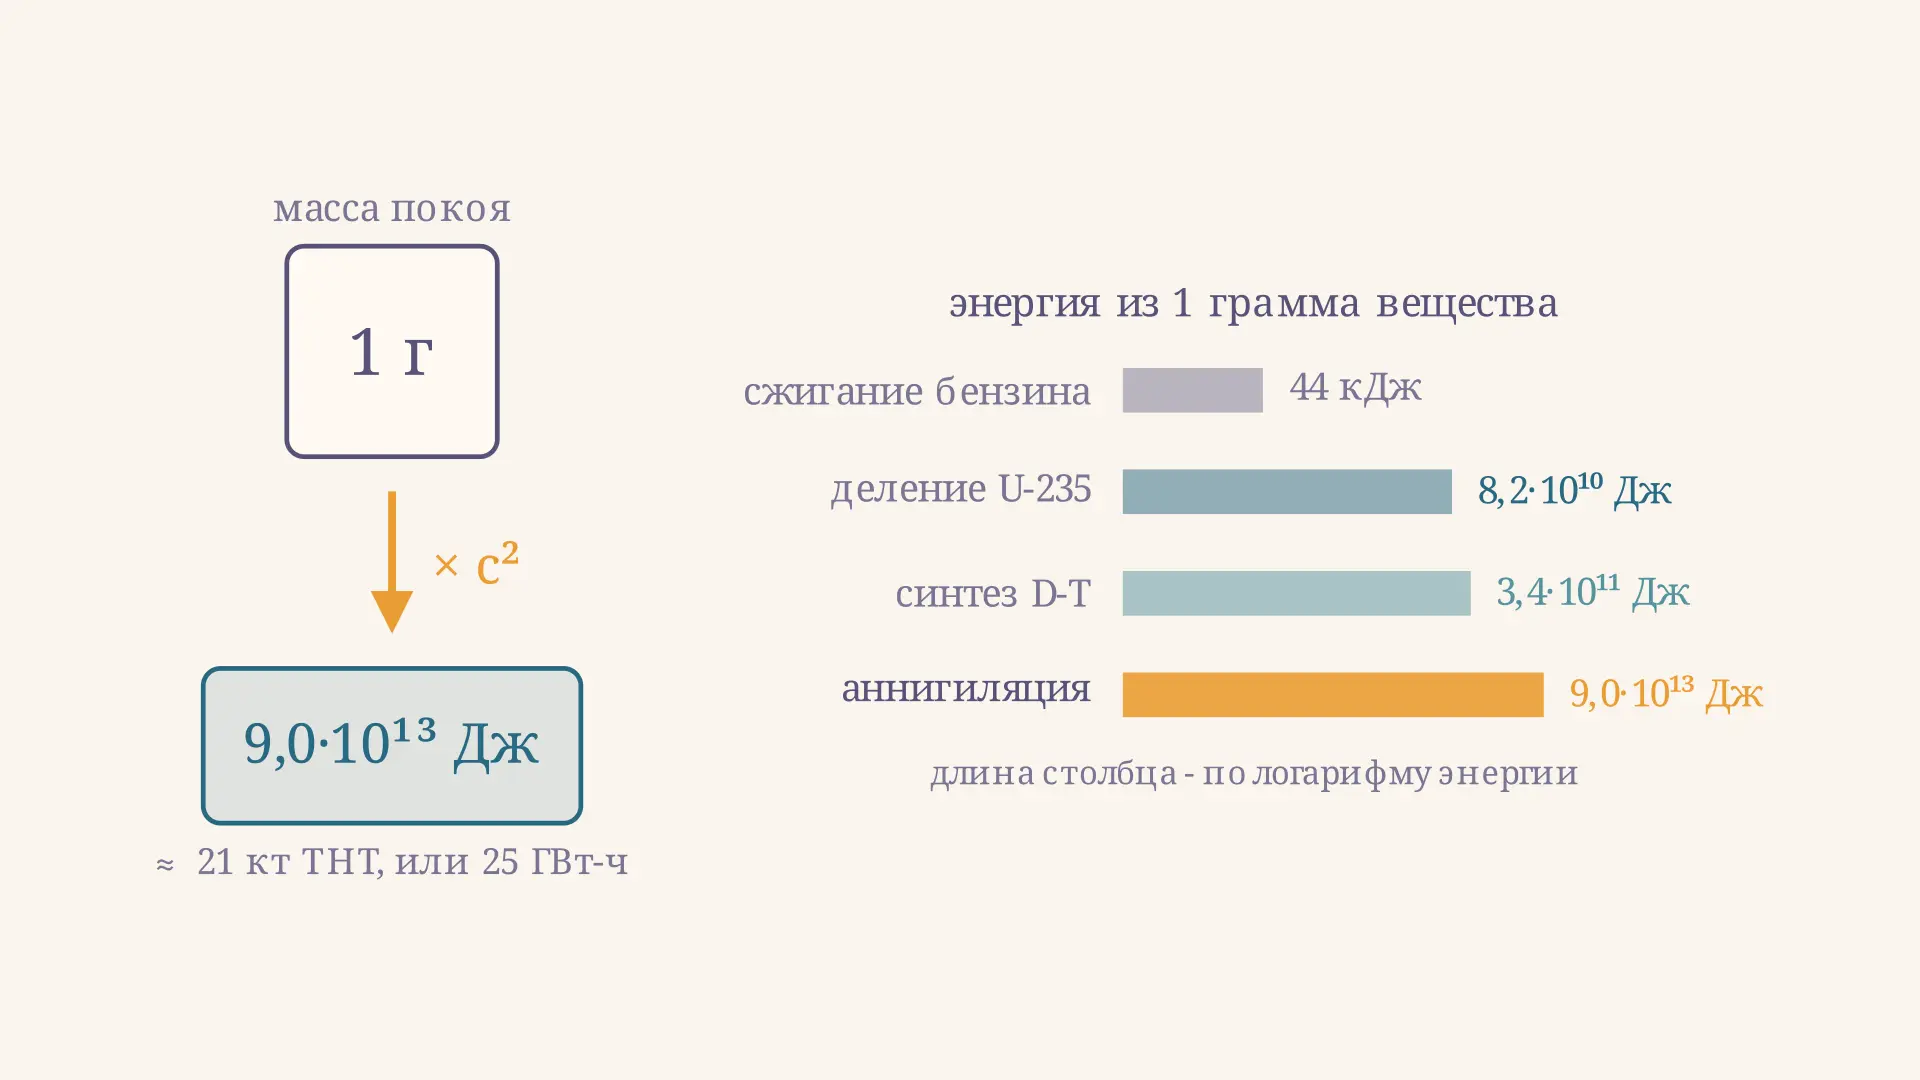
Связь массы и энергии: формула E = mc² и расчёты
Связь массы и энергии простыми словами: что значит формула E = mc², как считать энергию покоя, дефект массы и энергию связи ядра, откуда энергия деления, синтеза и аннигиляции.
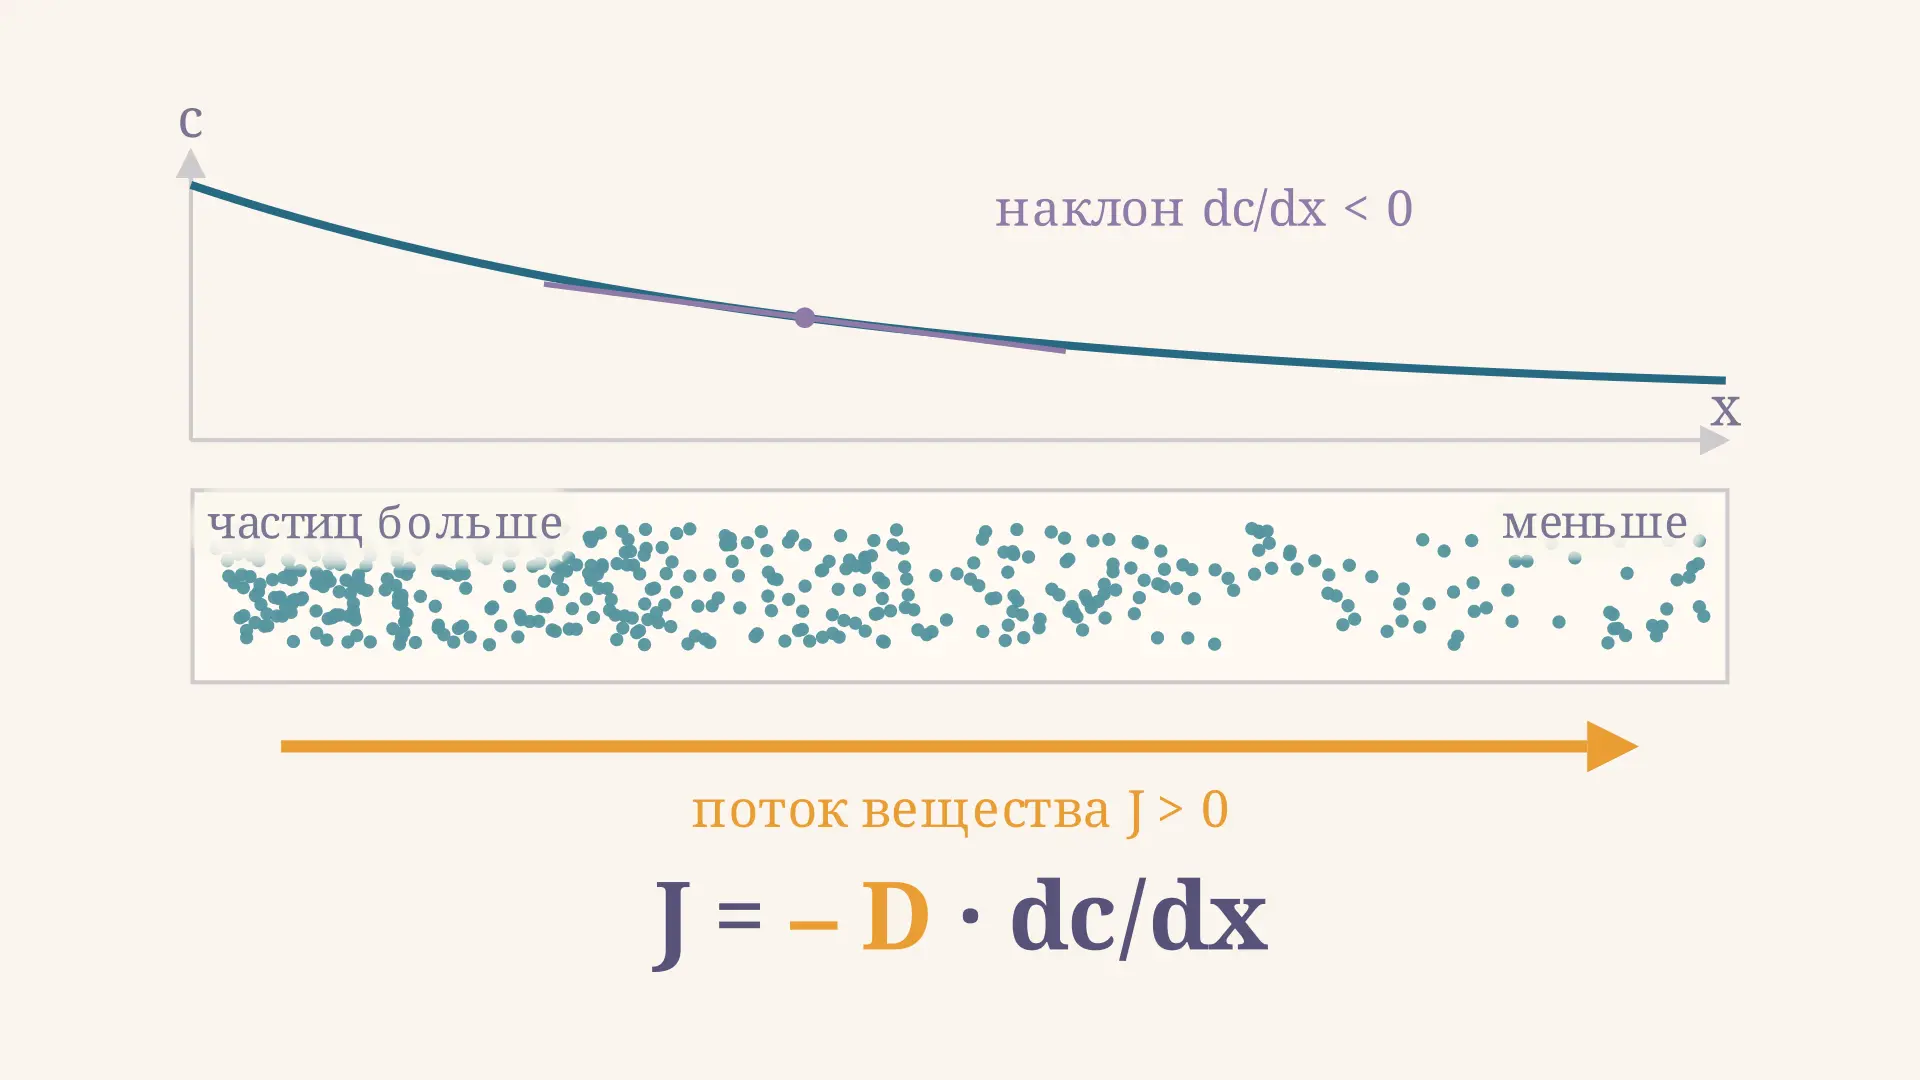
Законы Фика: первый и второй закон диффузии
Разбираем законы Фика: откуда берётся минус в формуле потока, как второй закон превращается в уравнение диффузии, от чего зависит коэффициент диффузии и как оценить время переноса.
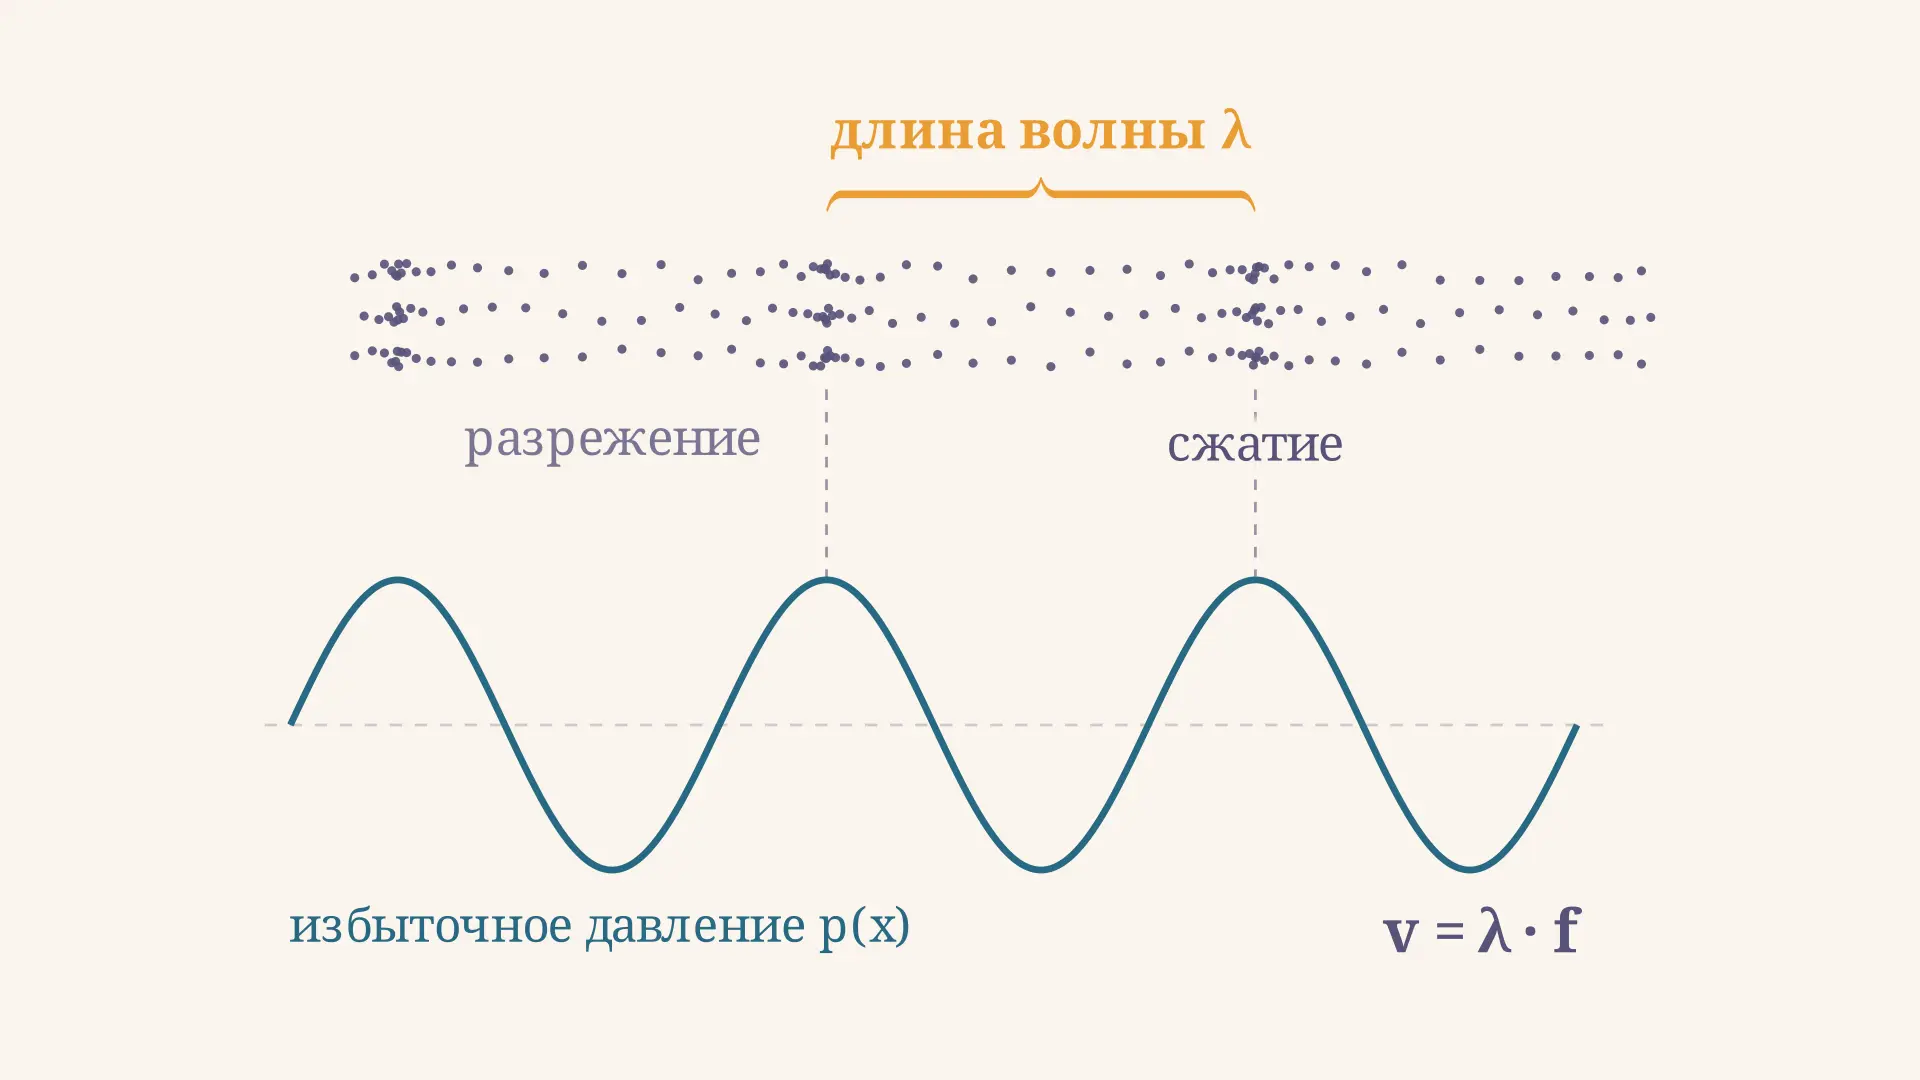
Звуковые волны: характеристики и формулы
Характеристики звуковых волн: частота, период, длина волны и скорость, амплитуда давления, интенсивность, высота и тембр. Формулы, расчёты и связь длины волны со средой.
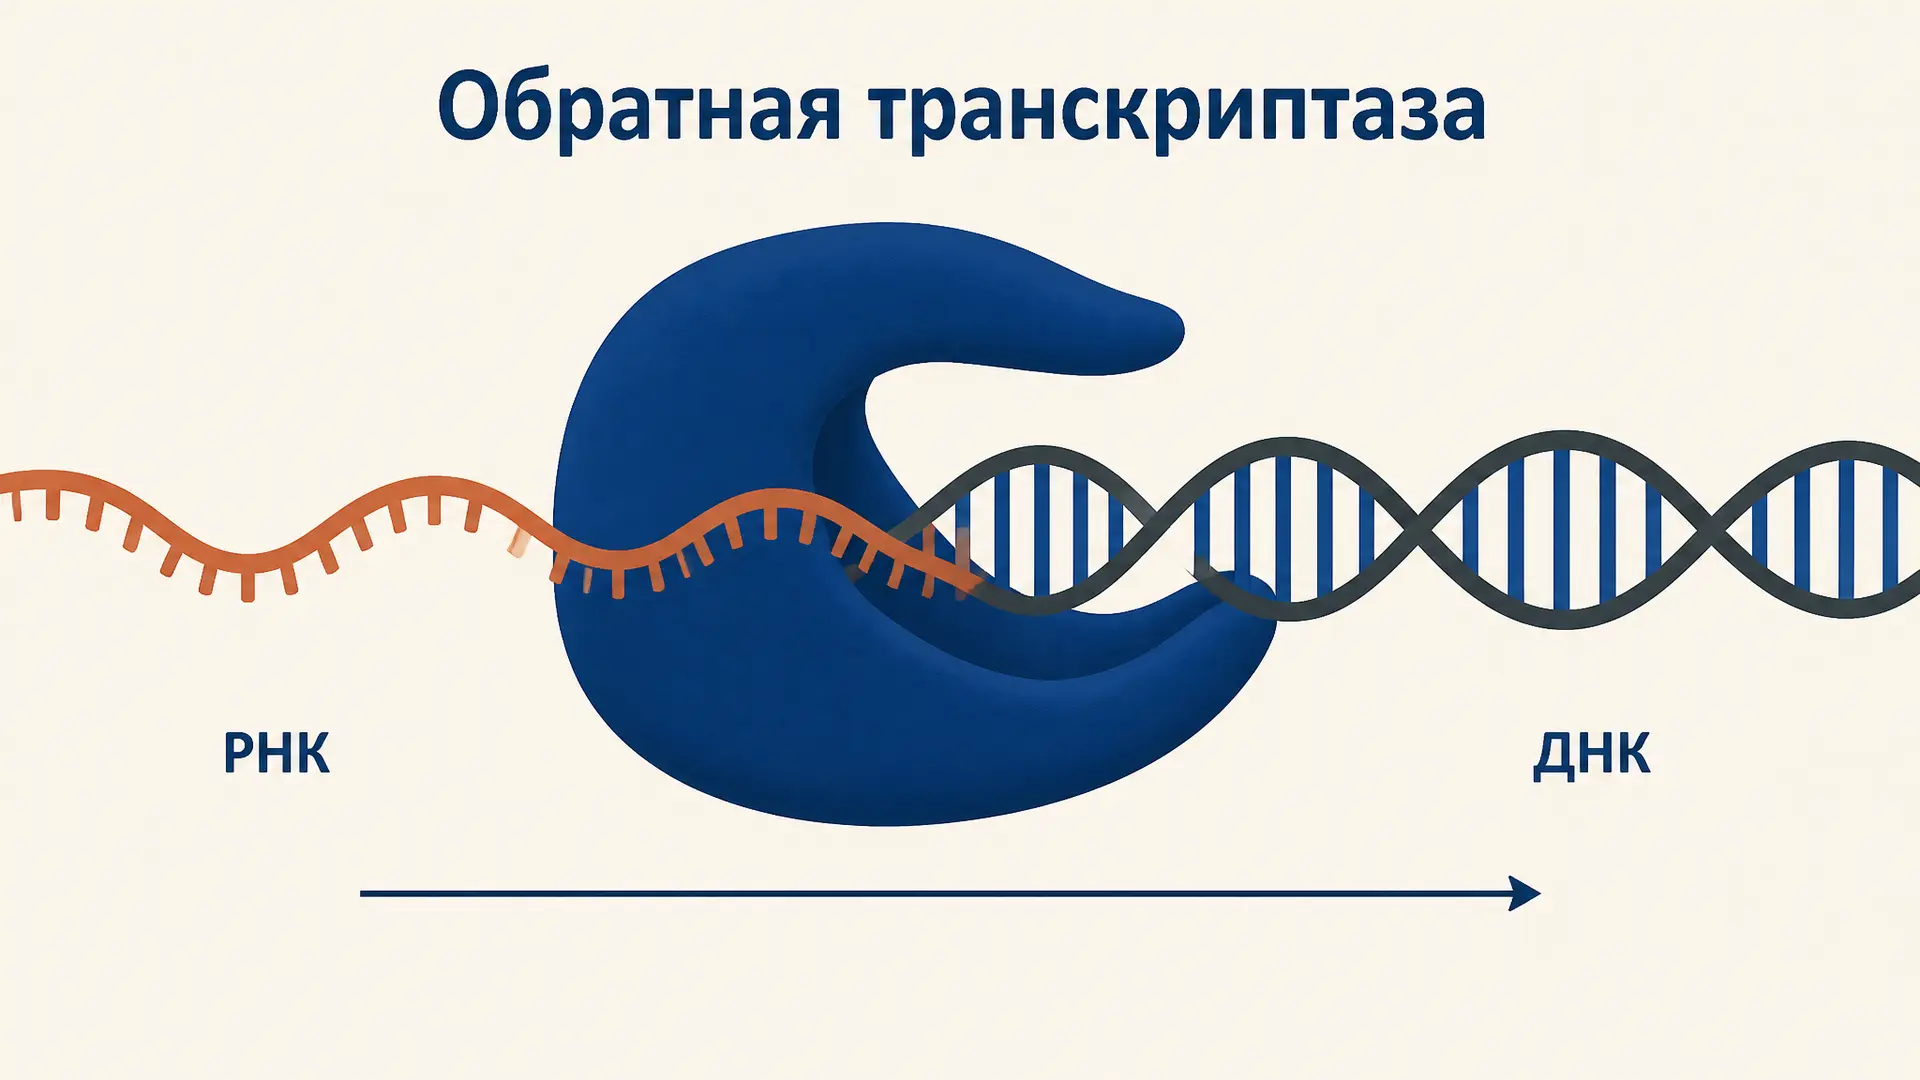
Обратная транскриптаза: механизм работы и строение
Как обратная транскриптаза переписывает РНК в ДНК: три активности фермента, строение p66/p51, два переноса цепи, низкая точность, ингибиторы НИОТ и ННИОТ, ОТ-ПЦР.
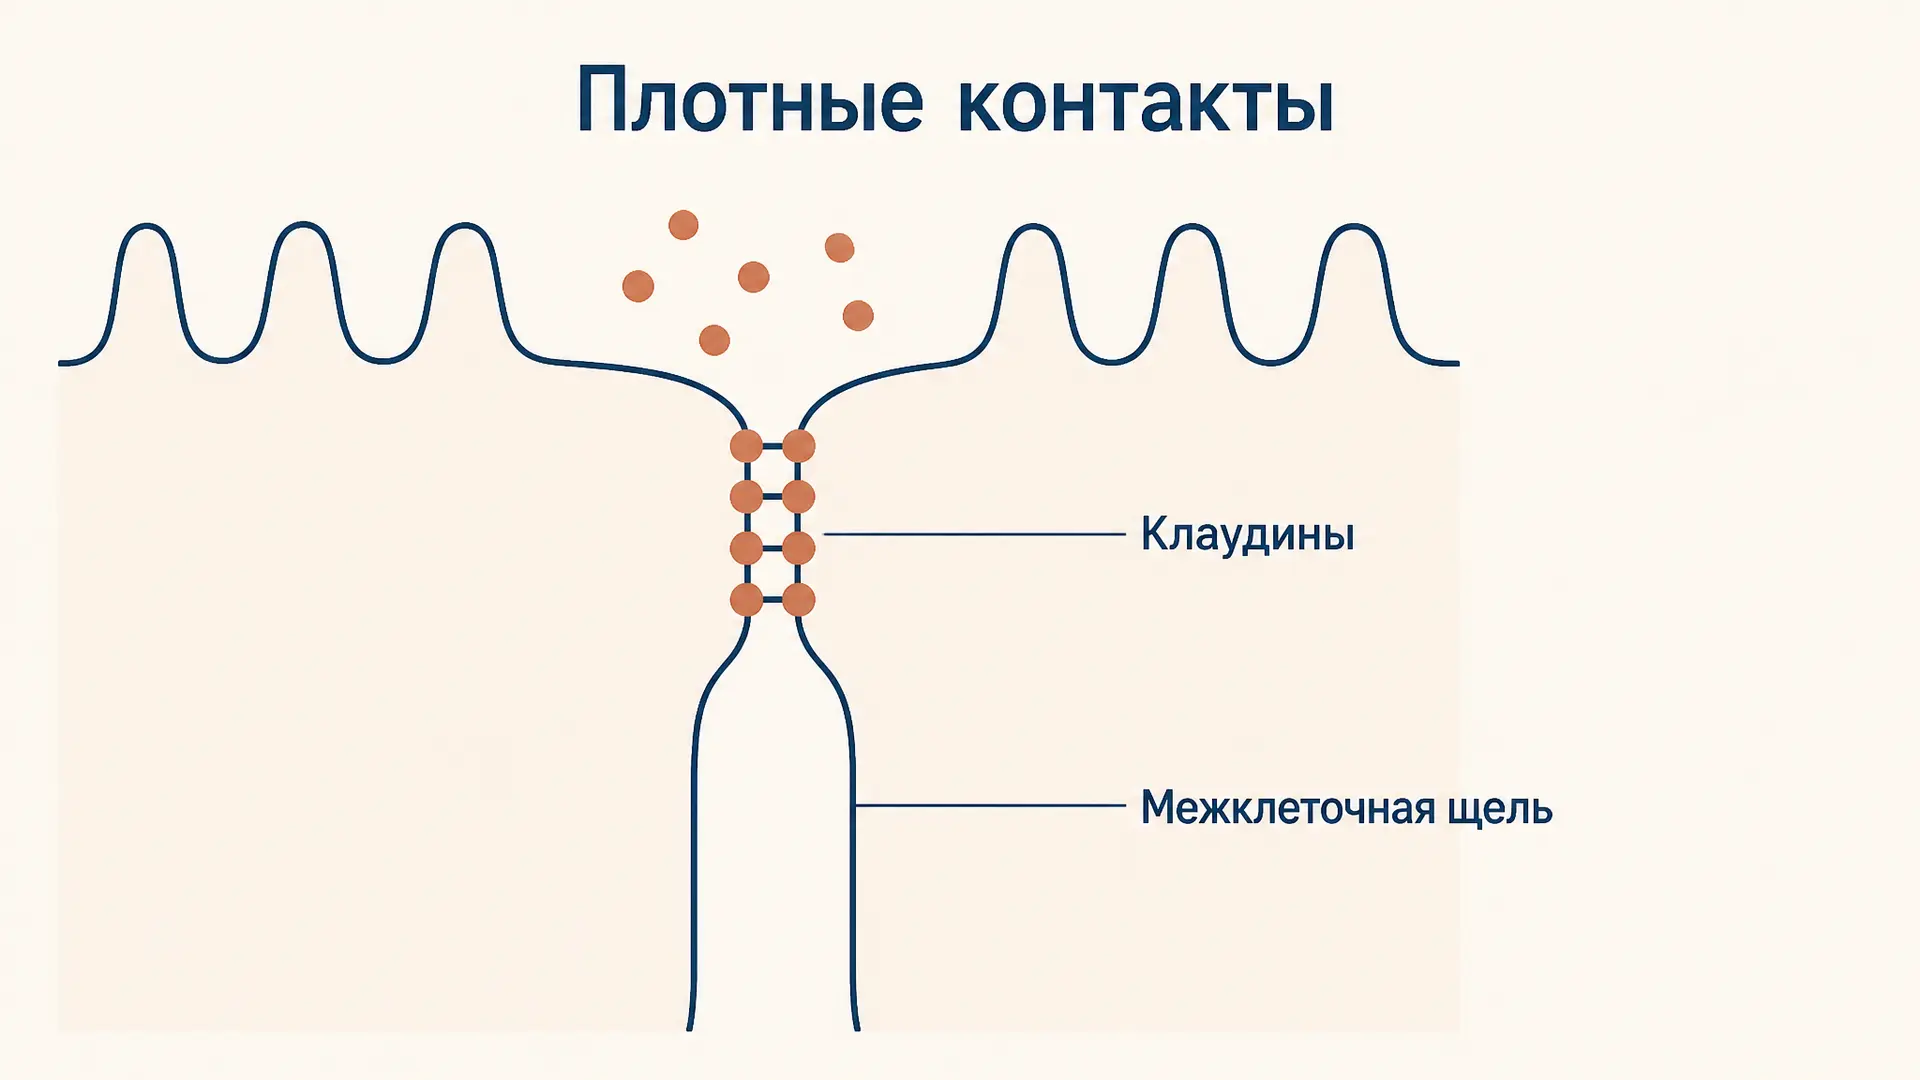
Плотные контакты и клаудины: строение и функции
Плотные контакты и клаудины: чем они отличаются от десмосом и щелевых контактов, как устроены тяжи, зачем эпителию клаудины-поры и как рассчитать трансэпителиальное сопротивление.
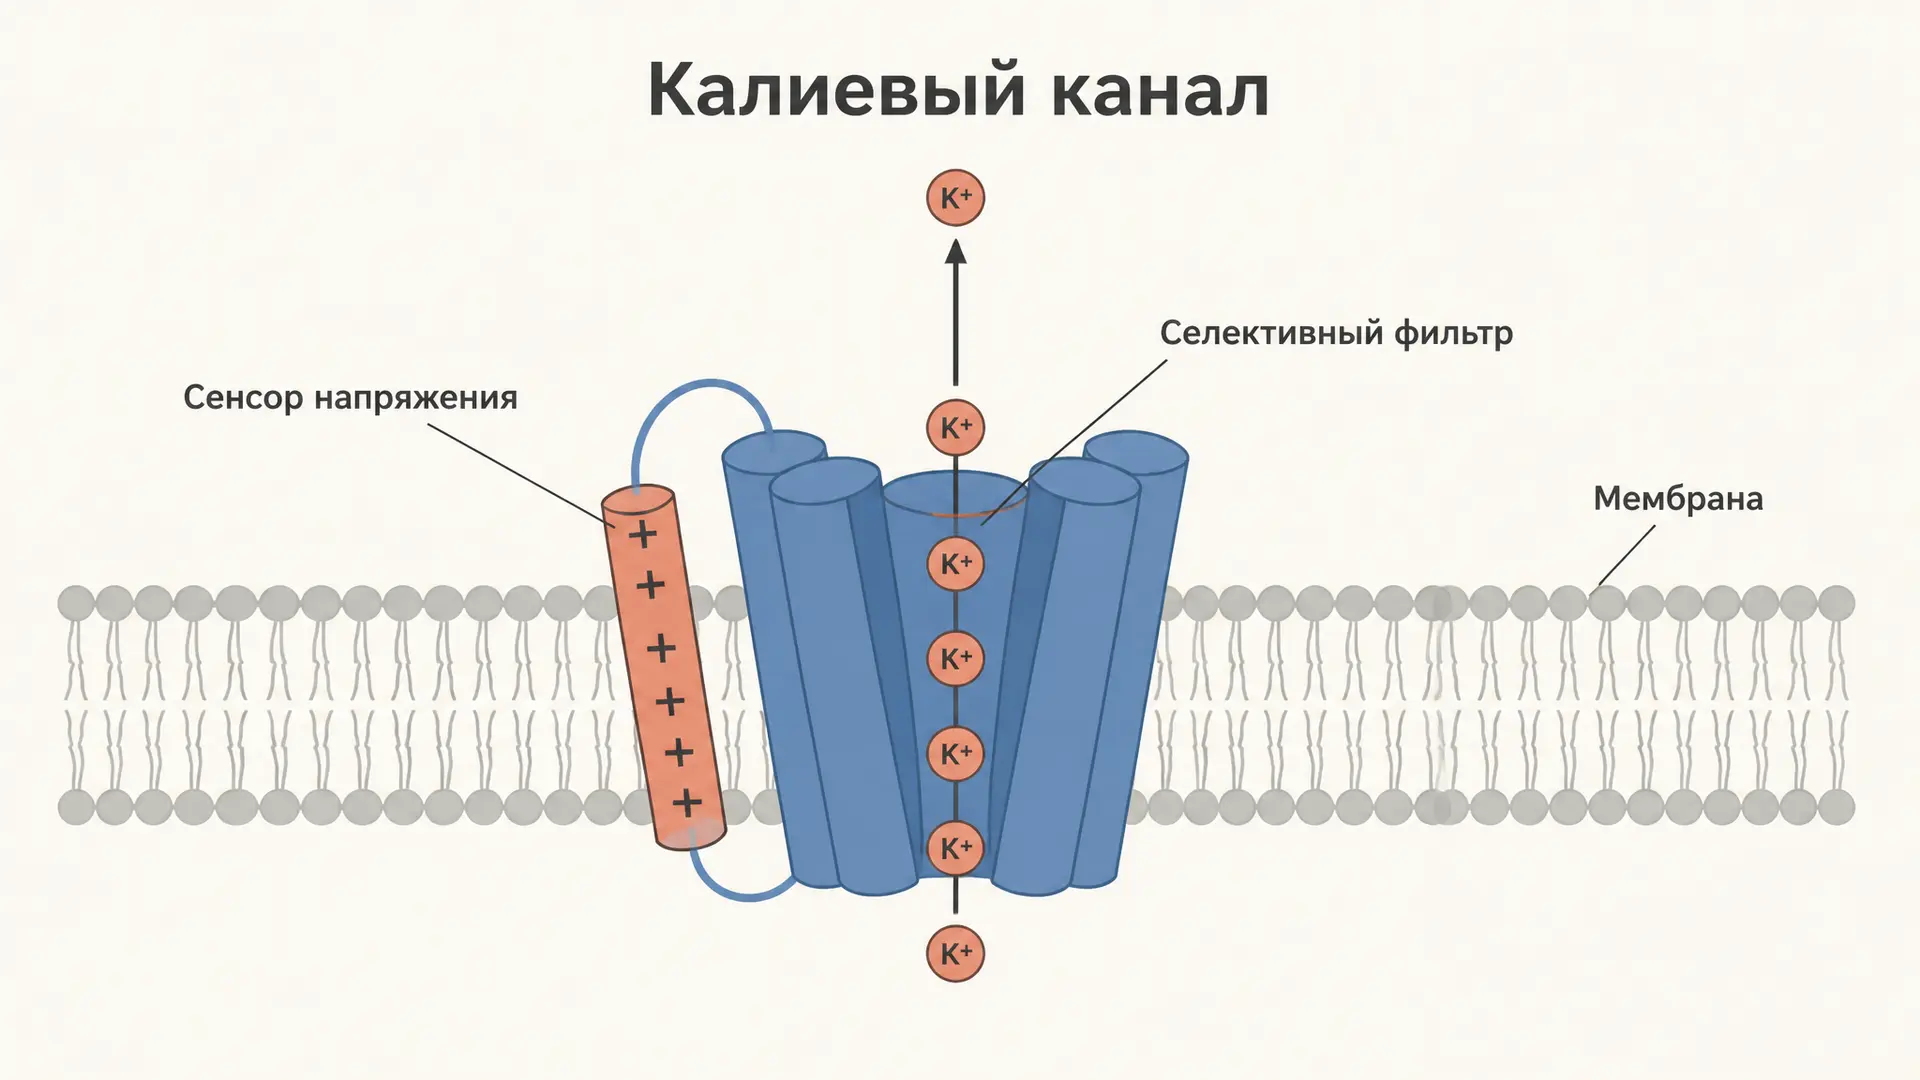
Потенциалзависимые калиевые каналы: строение и роль
Потенциалзависимые калиевые каналы Kv: тетрамер с сенсором S4, фильтр TVGYG и почему натрий не проходит, семейства от Shaker до hERG, блокаторы ТЭА и 4-АП, каналопатии.
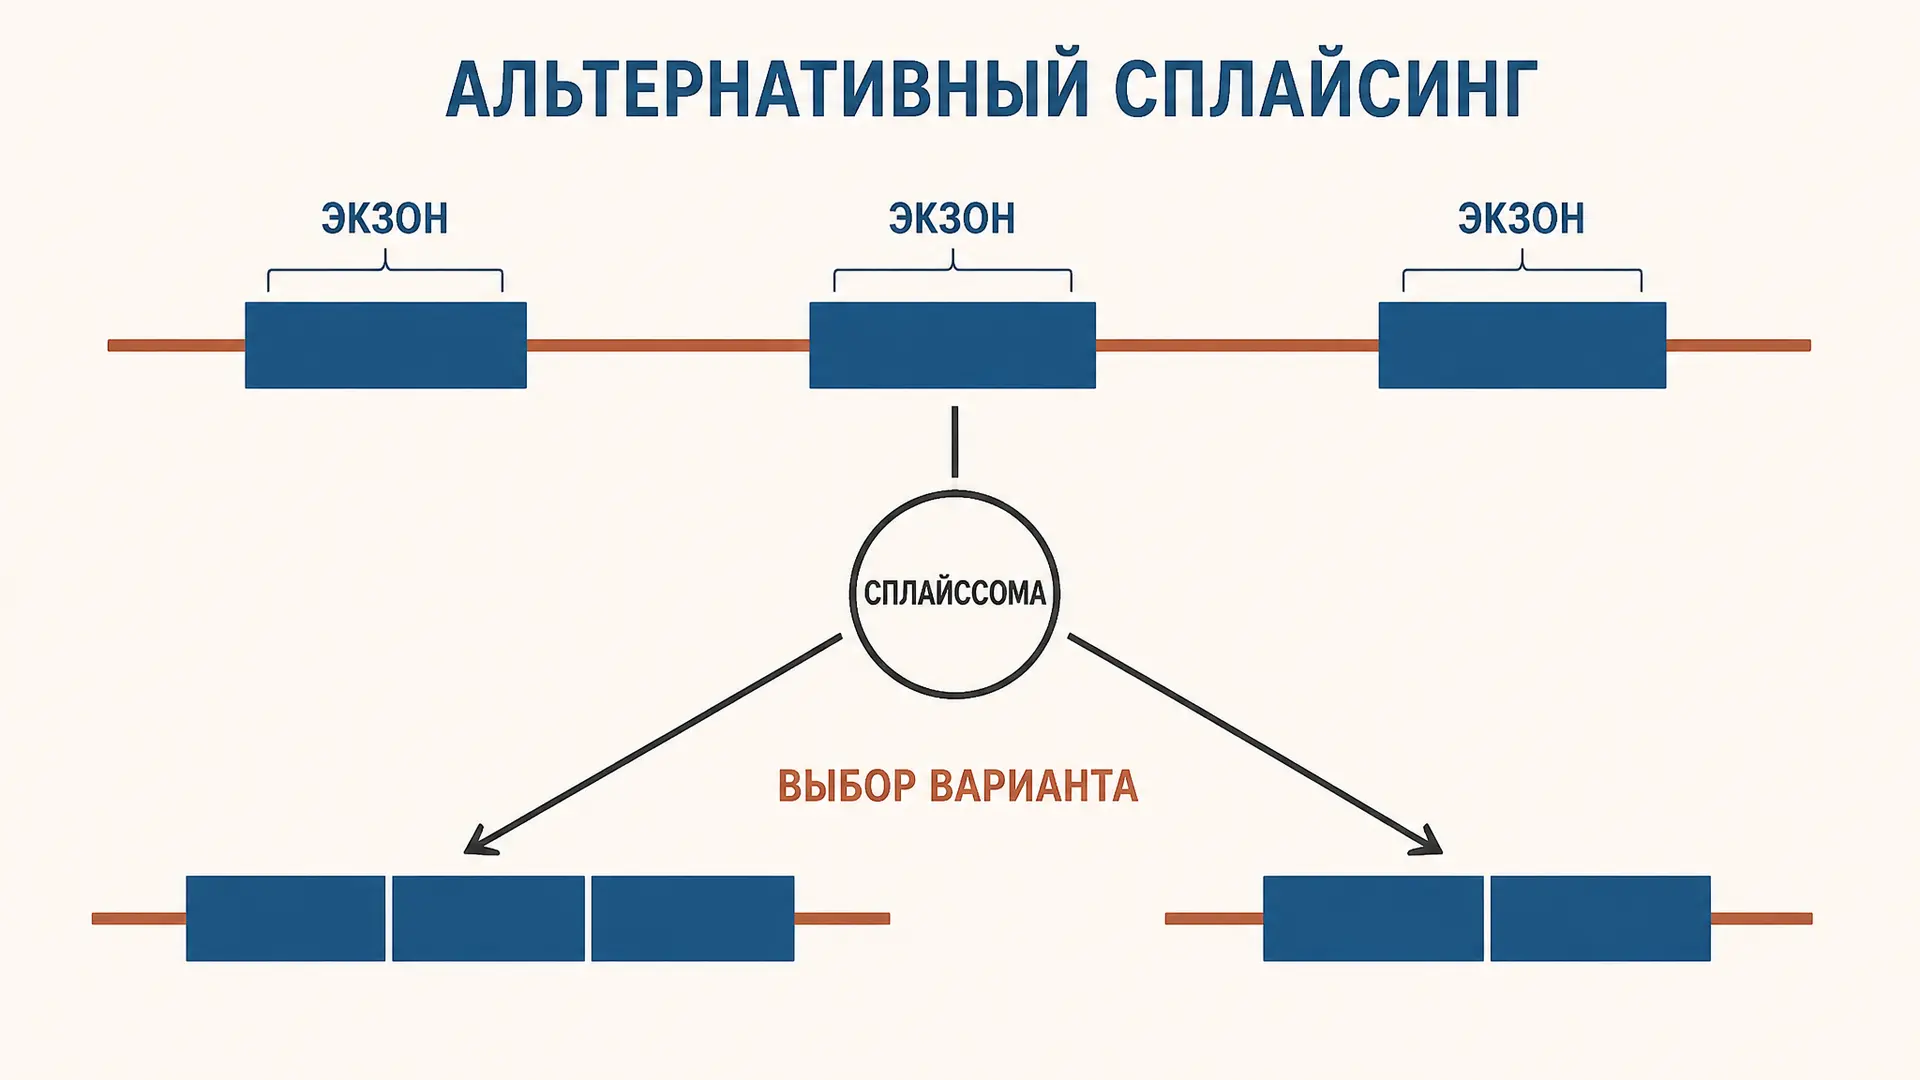
Альтернативный сплайсинг: регуляция вариантов РНК
Регуляция альтернативного сплайсинга: как сплайсосома выбирает экзоны, что делают ESE, ESS, белки SR и hnRNP, как РНК-полимераза меняет выбор и как RNA-seq измеряет PSI.
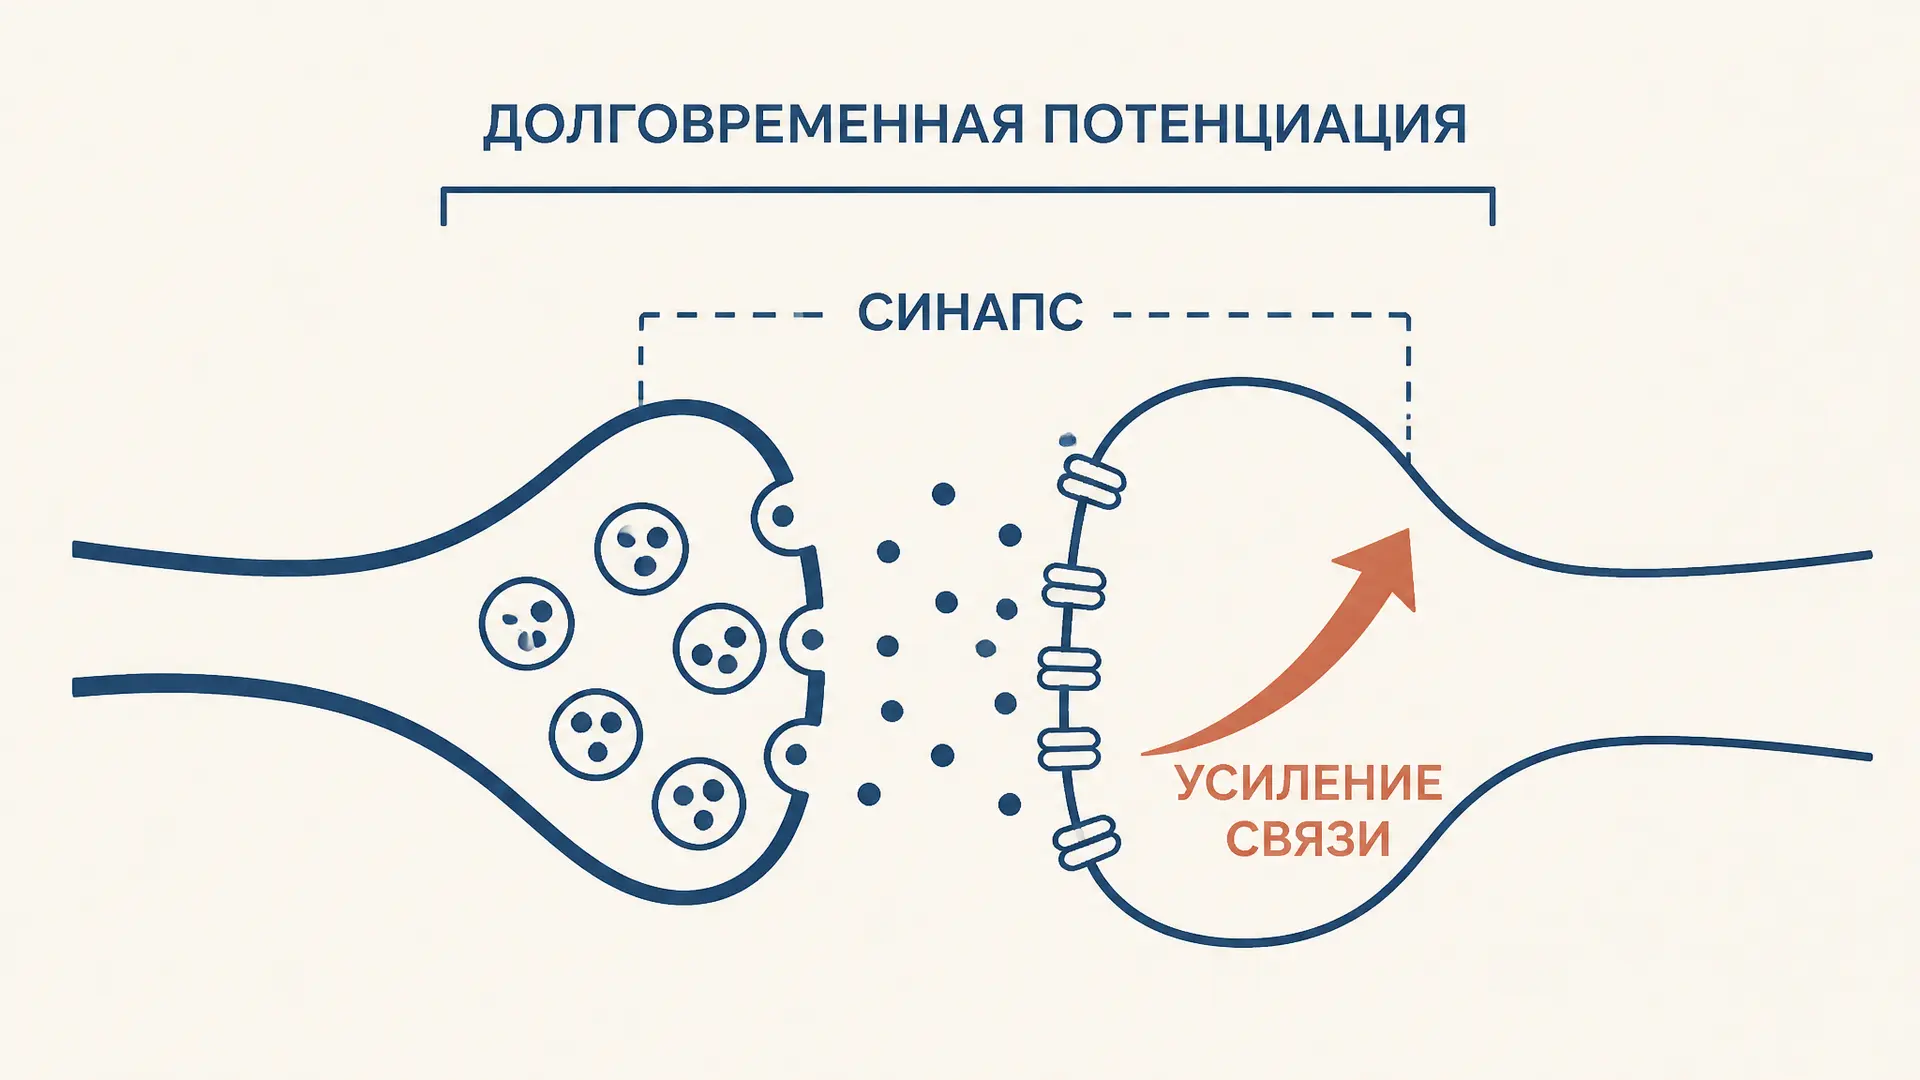
Долговременная потенциация LTP: как крепнет синапс
Долговременная потенциация LTP простыми словами: опыт Блисса и Лёмо, NMDA-рецептор, кальций, AMPA-рецепторы, ранняя и поздняя фазы, правило Хебба, свойства и связь с памятью.
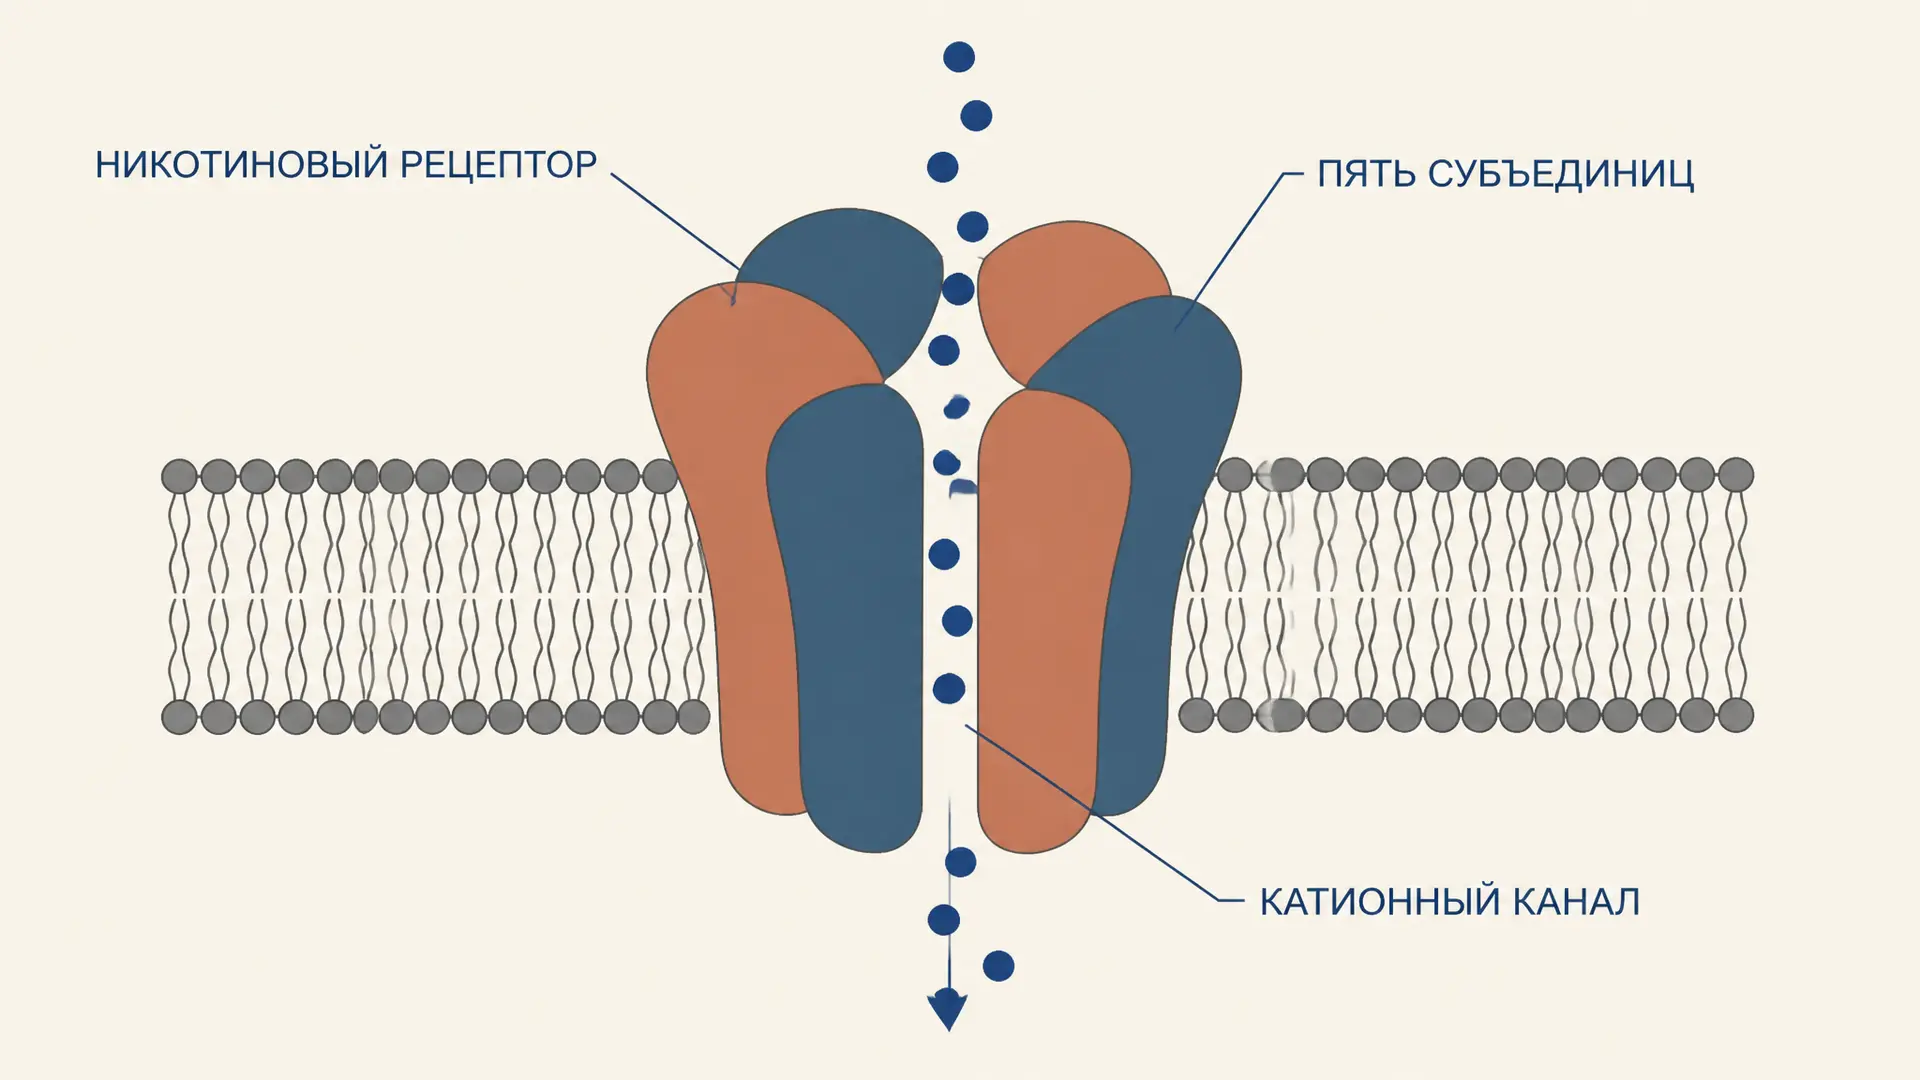
Никотиновый рецептор ацетилхолина: канал и синапс
Как работает никотиновый рецептор ацетилхолина: пентамер, два сайта связывания, катионный канал, концевая пластинка, десенситизация, мышечные и нейрональные подтипы, кураре и пэтч-кламп.
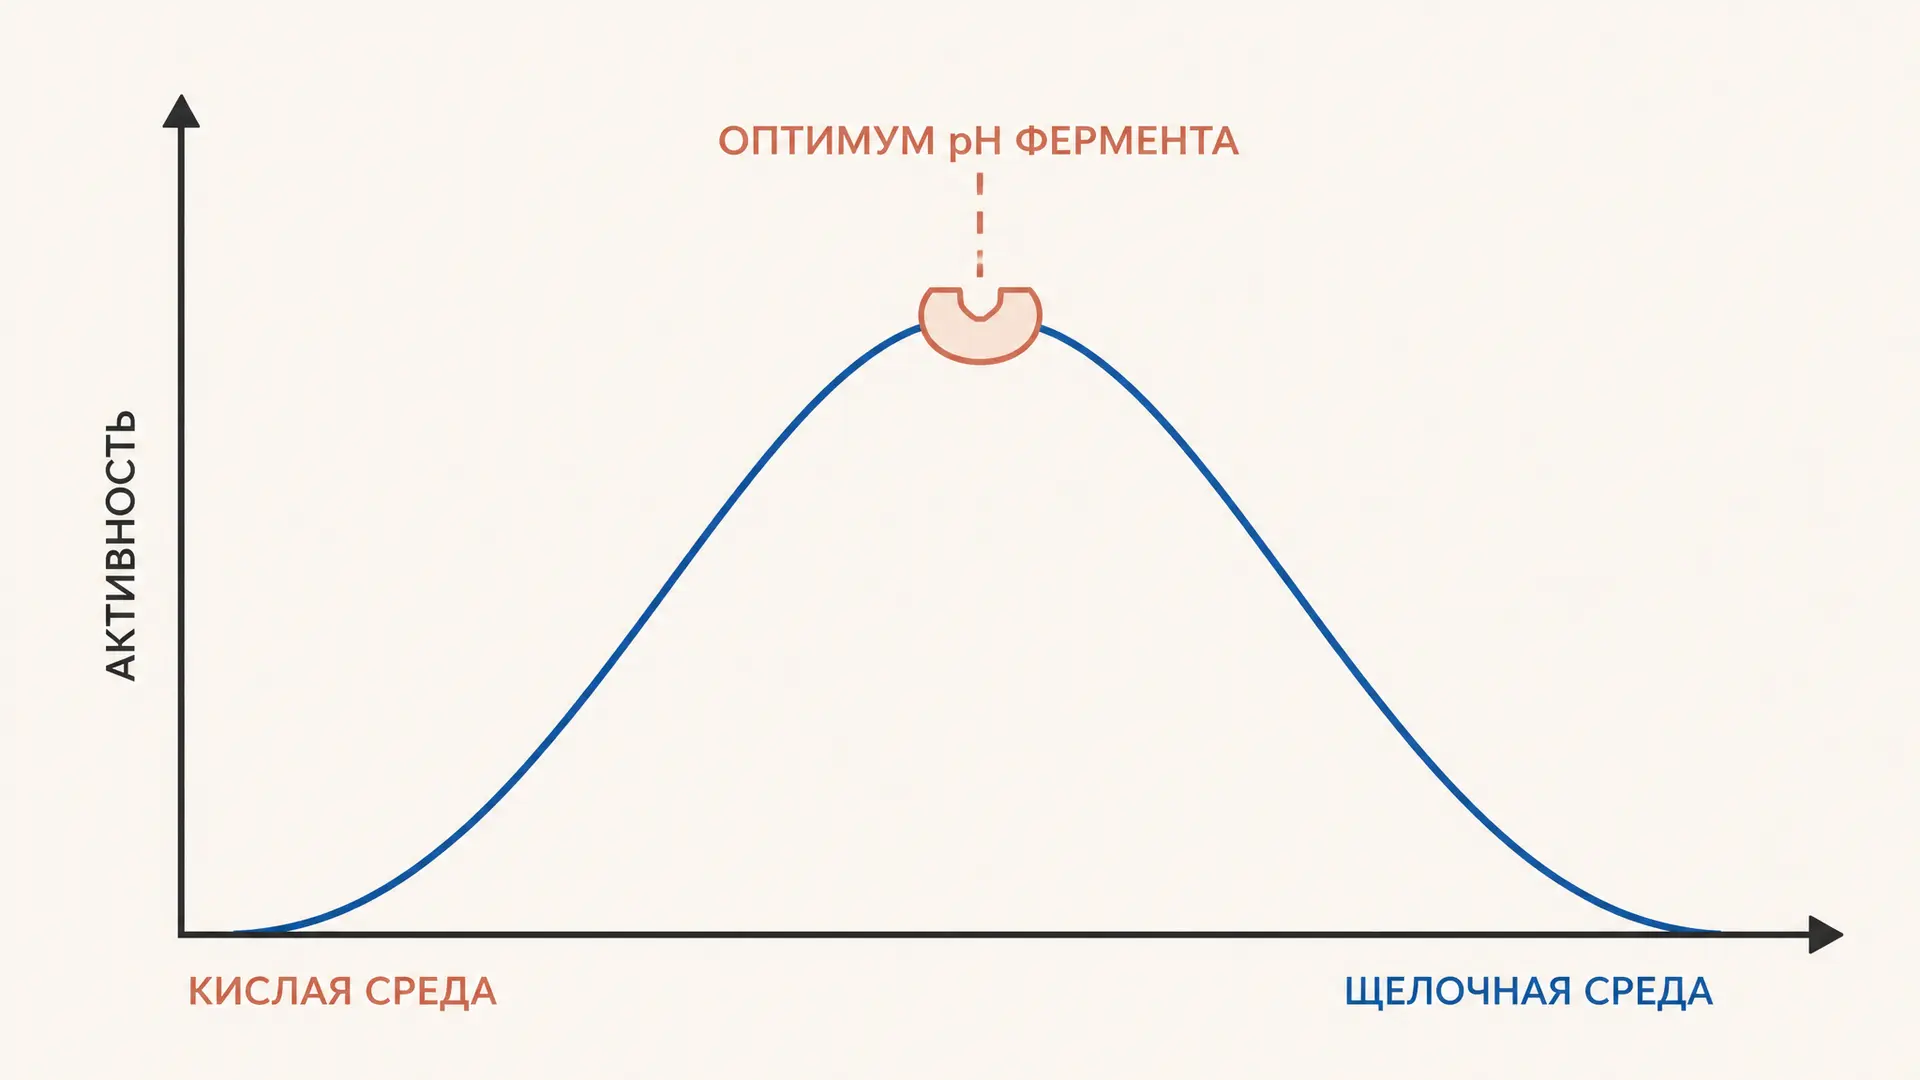
Оптимум pH фермента: почему активность меняется
Оптимум pH фермента: как ионизация активного центра и субстрата формирует кривую активности, почему различаются пепсин, трипсин и щелочная фосфатаза, как поставить опыт с буфером.
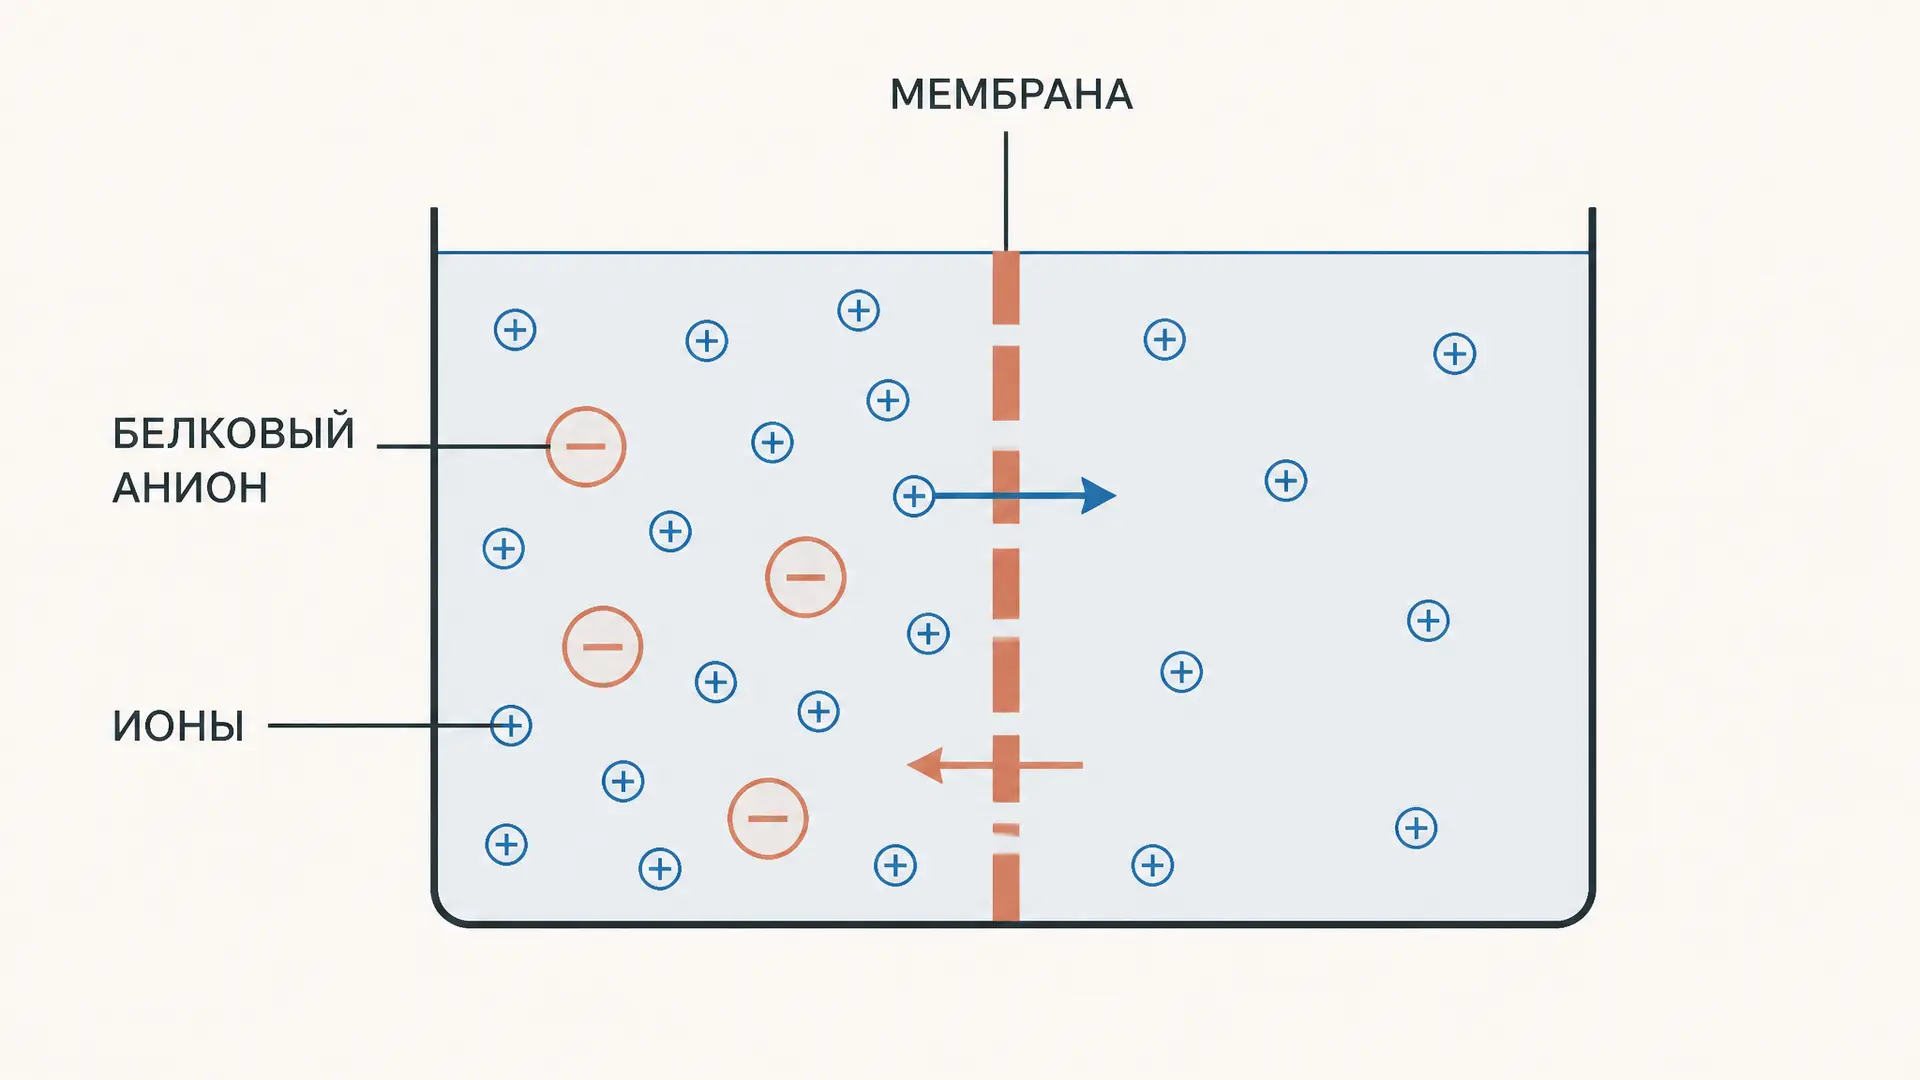
Равновесие Доннана: ионы и мембрана
Равновесие Доннана: как непроникающий белковый анион меняет распределение ионов, откуда берутся потенциал и осмотический приток воды и зачем клетке натрий-калиевый насос.
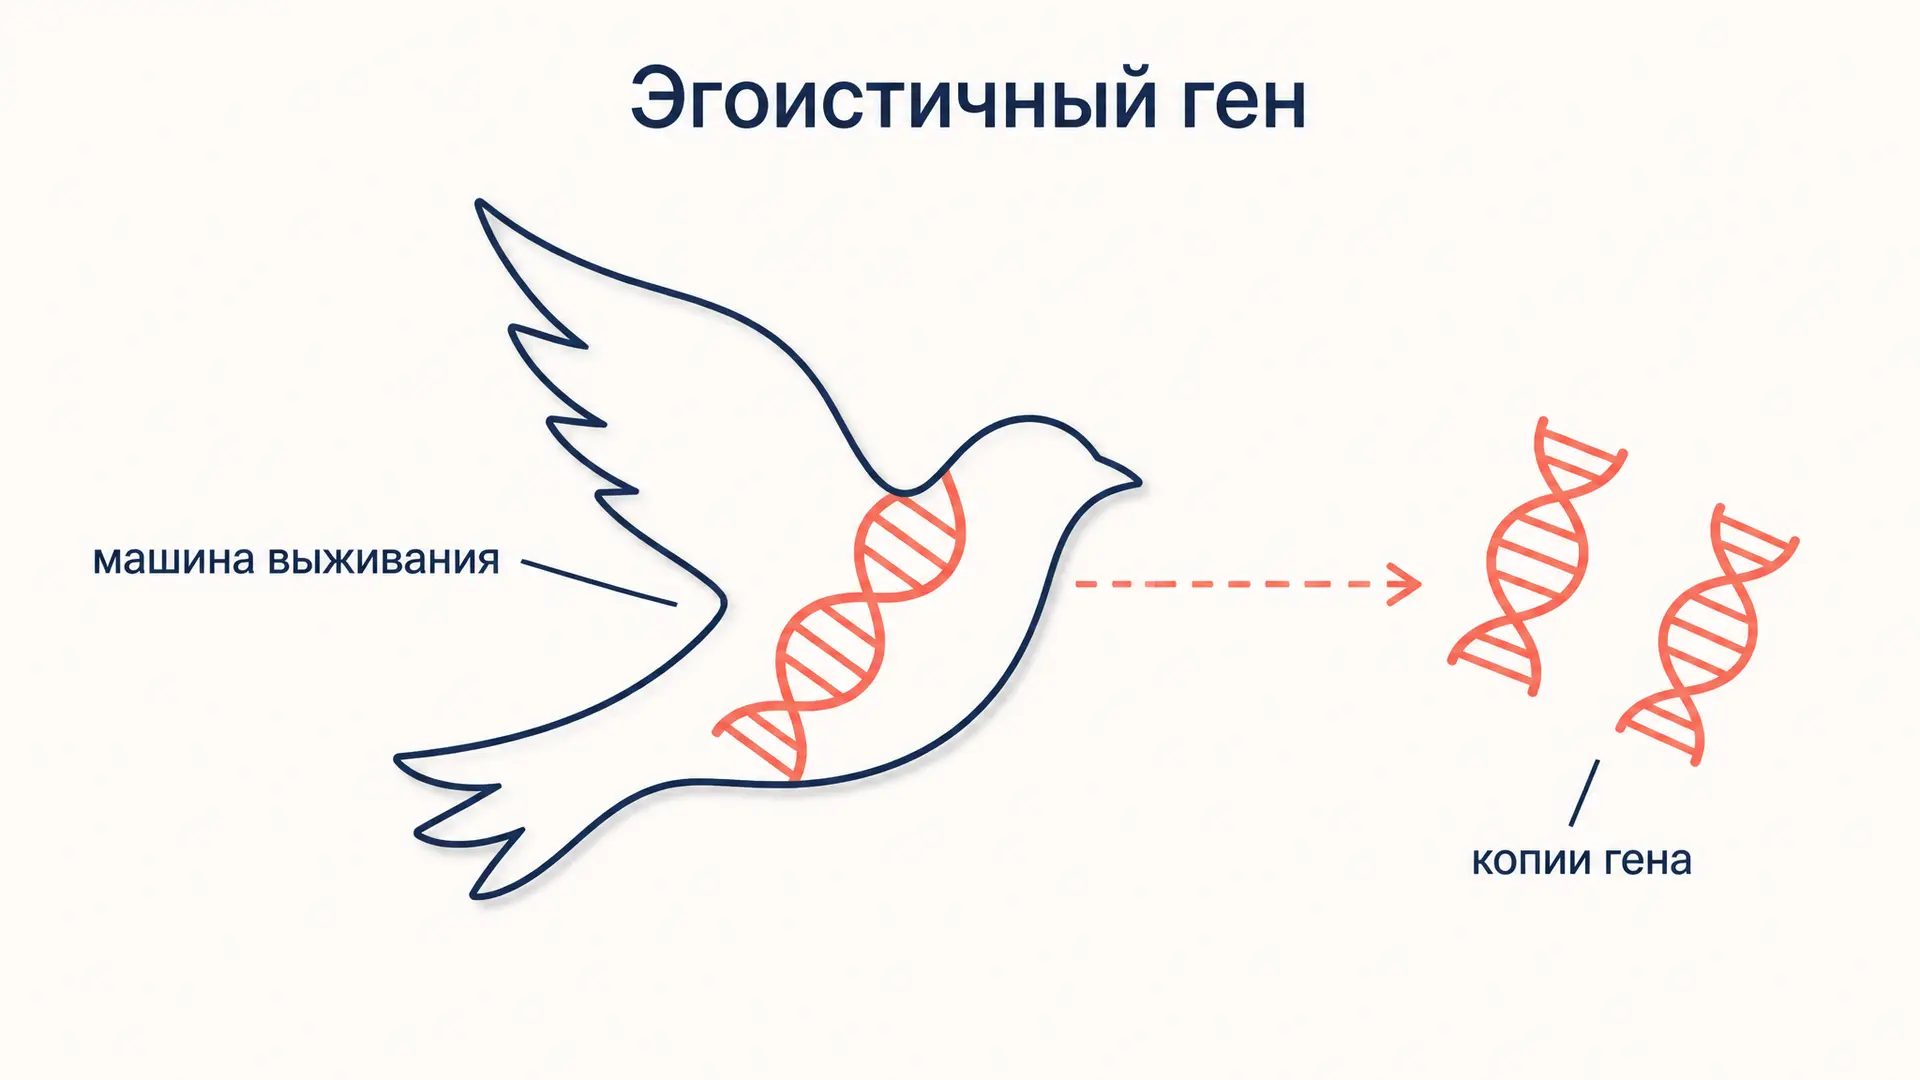
Эгоистичный ген: теория Докинза простыми словами
Теория эгоистичного гена Докинза: почему единица отбора ген, а не особь, как правило Гамильтона rB > C объясняет альтруизм, что такое ЭСС, мем и расширенный фенотип.
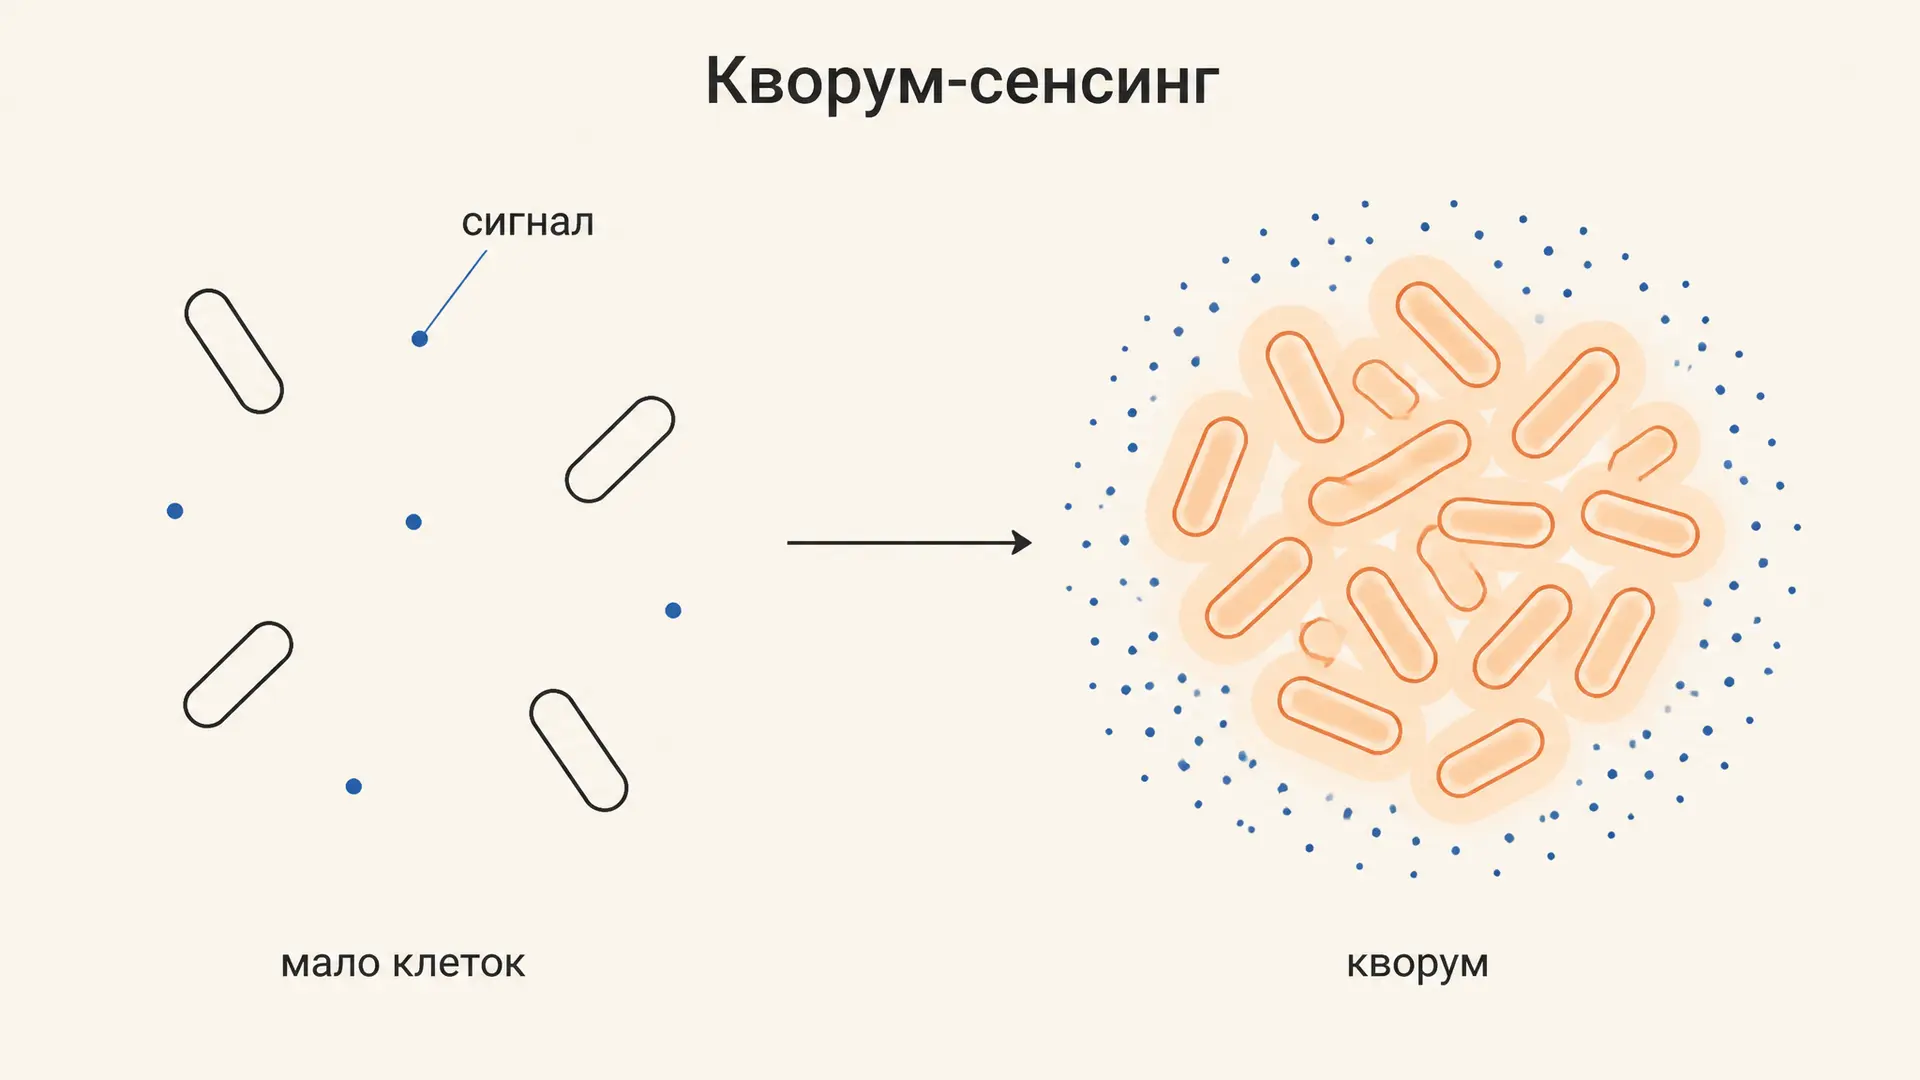
Кворум-сенсинг бактерий: как клетки считают соседей
Кворум-сенсинг бактерий простыми словами: автоиндукторы АГЛ, пептиды и AI-2, система LuxI/LuxR у Vibrio fischeri, биоплёнки, споруляция и идея подавления сигнала.
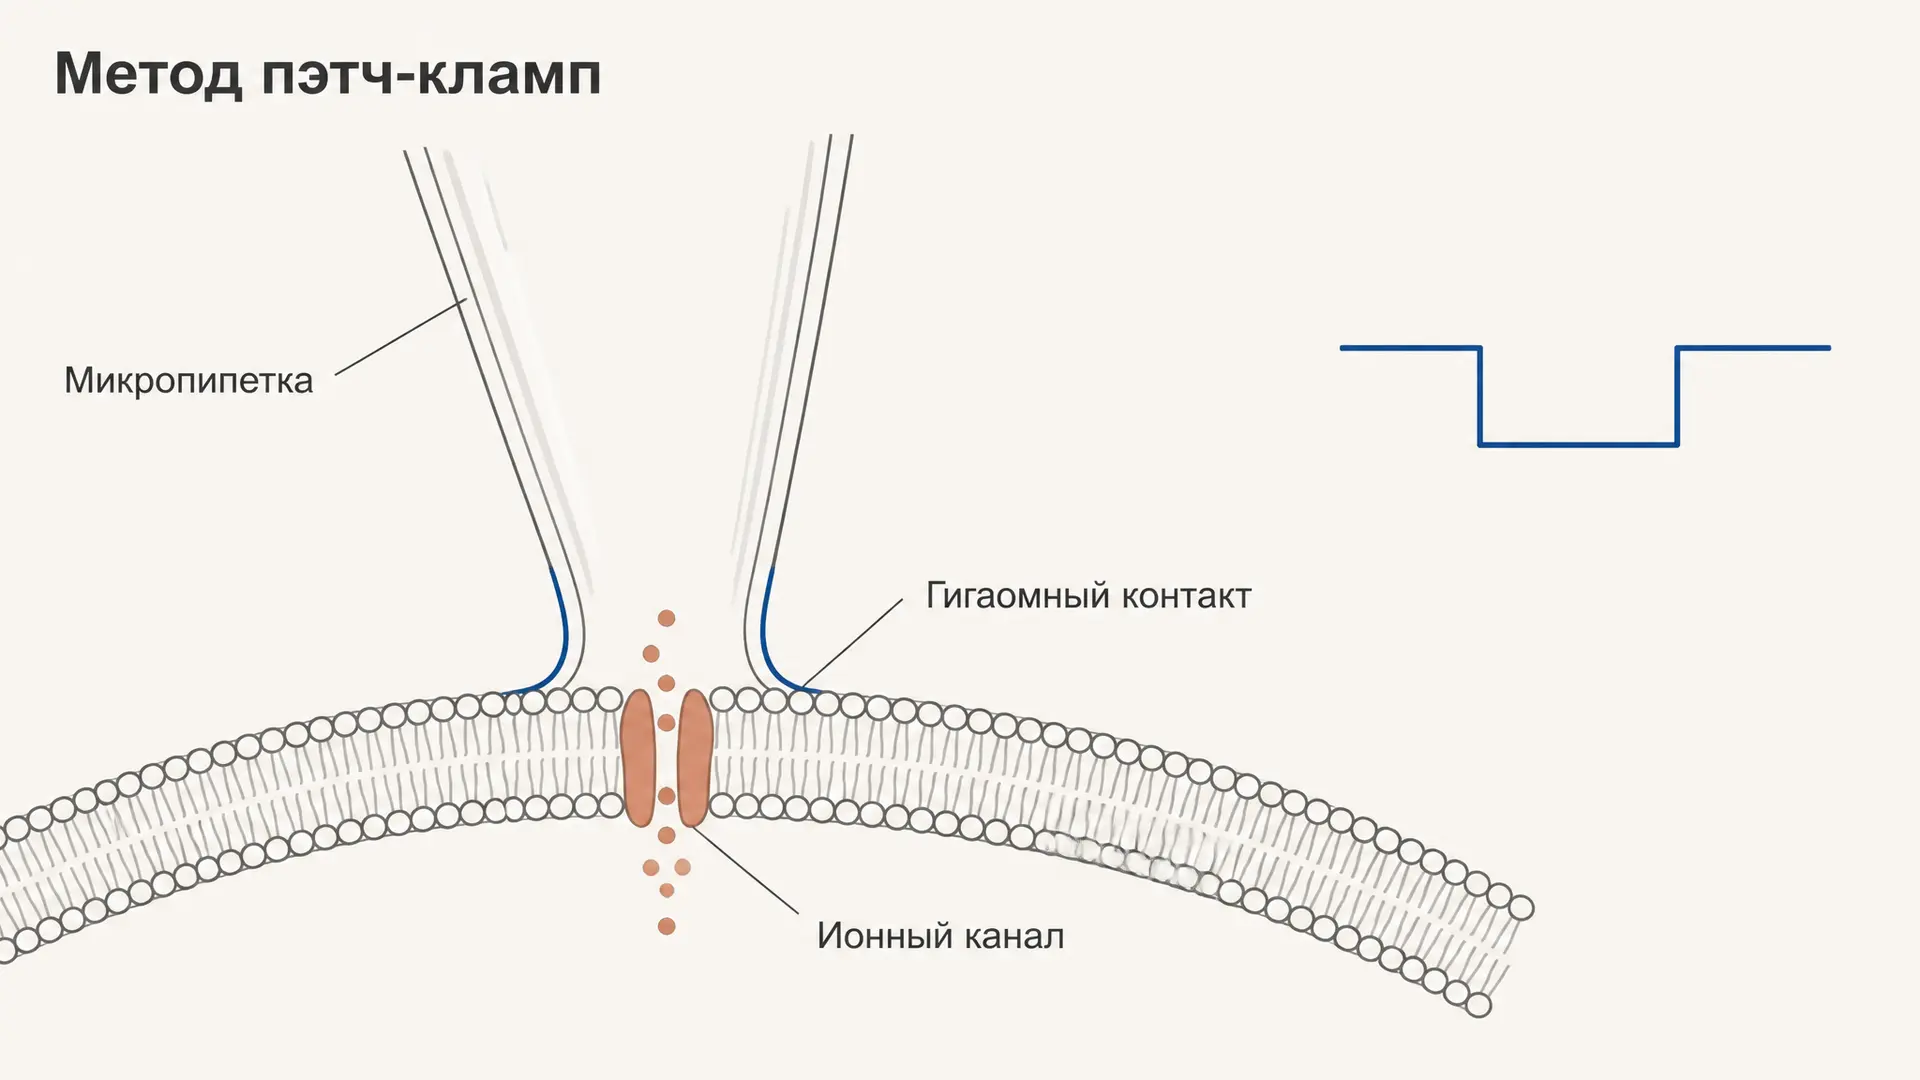
Метод пэтч-кламп: как записать ток одного ионного канала
Метод пэтч-кламп простыми словами: гигаомный контакт, четыре конфигурации записи, фиксация тока и напряжения, расчёт проводимости одиночного канала и ограничения метода.
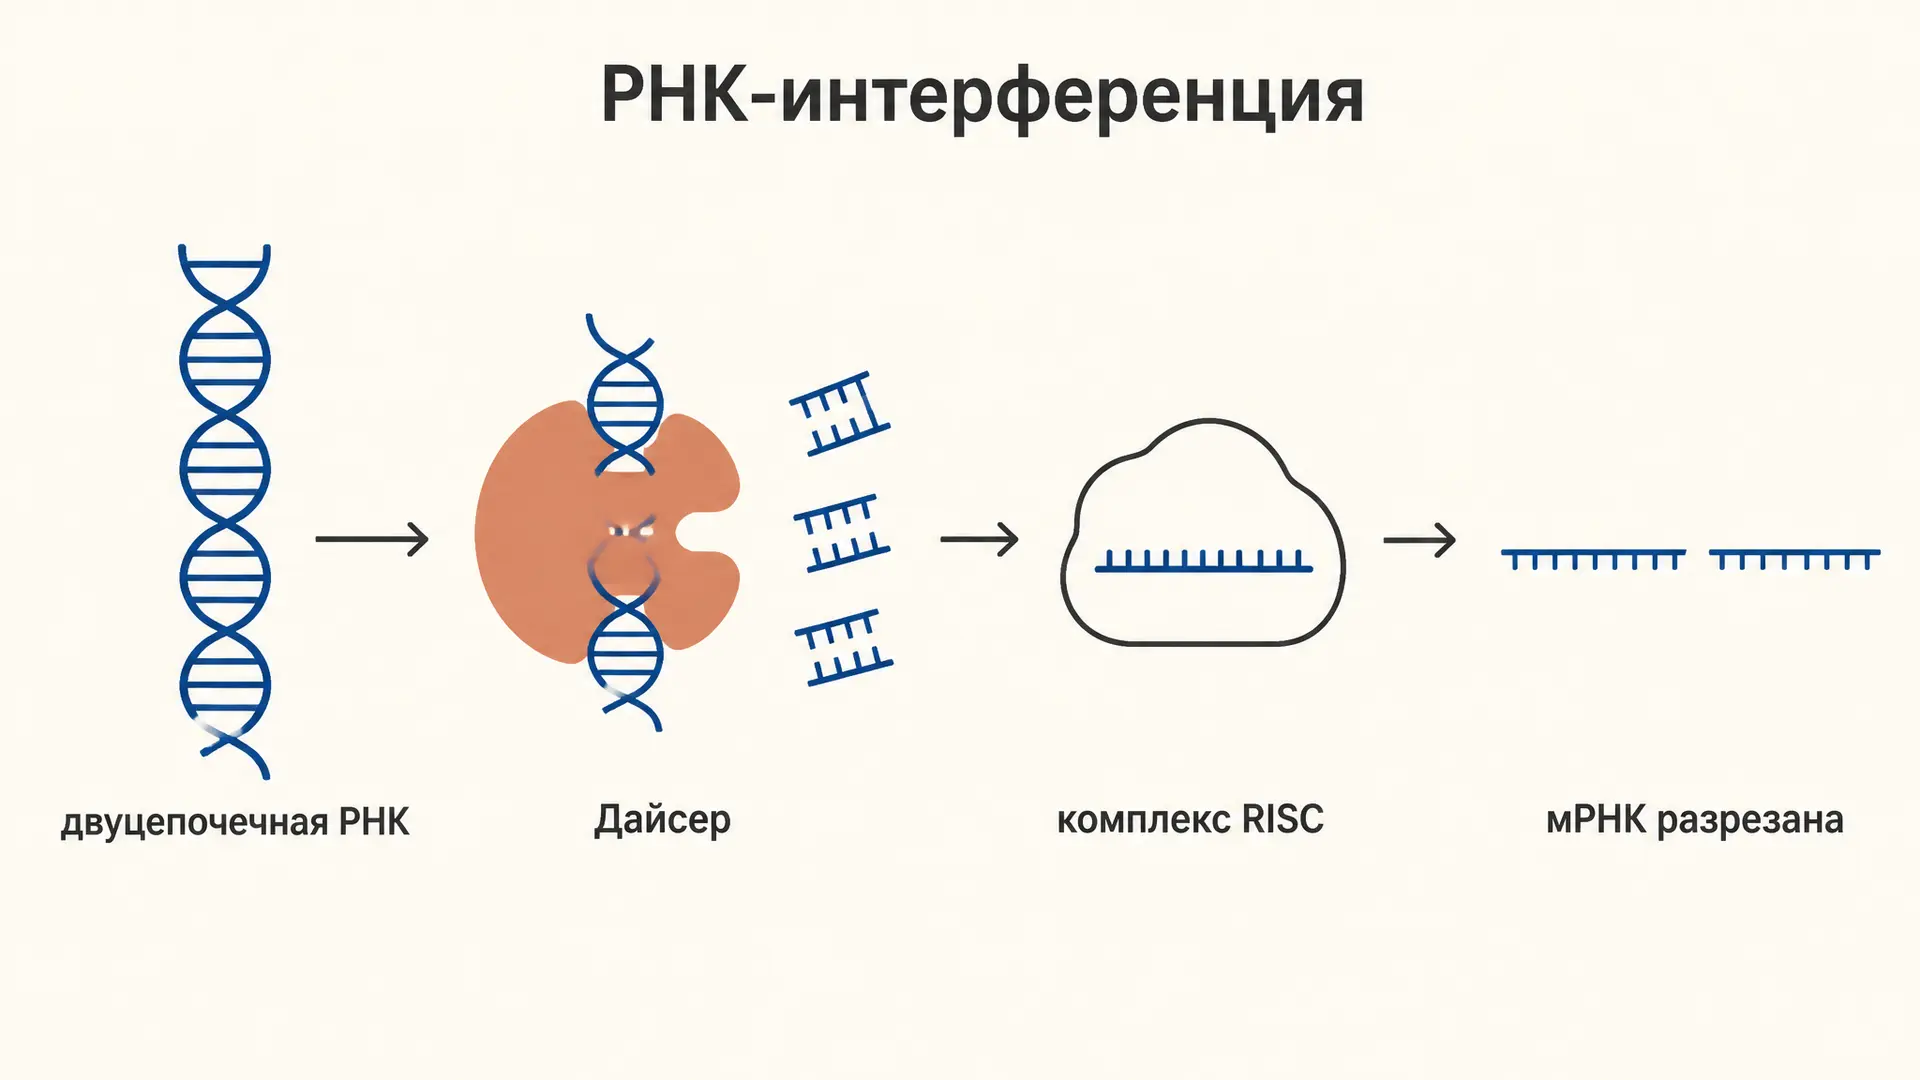
РНК-интерференция: механизм, Dicer, RISC и нокдаун генов
Механизм РНК-интерференции по шагам: открытие Файера и Мелло, работа Dicer и комплекса RISC, отличие siRNA от микроРНК, роль в клетке и расчёт нокдауна гена методом ΔΔCt.
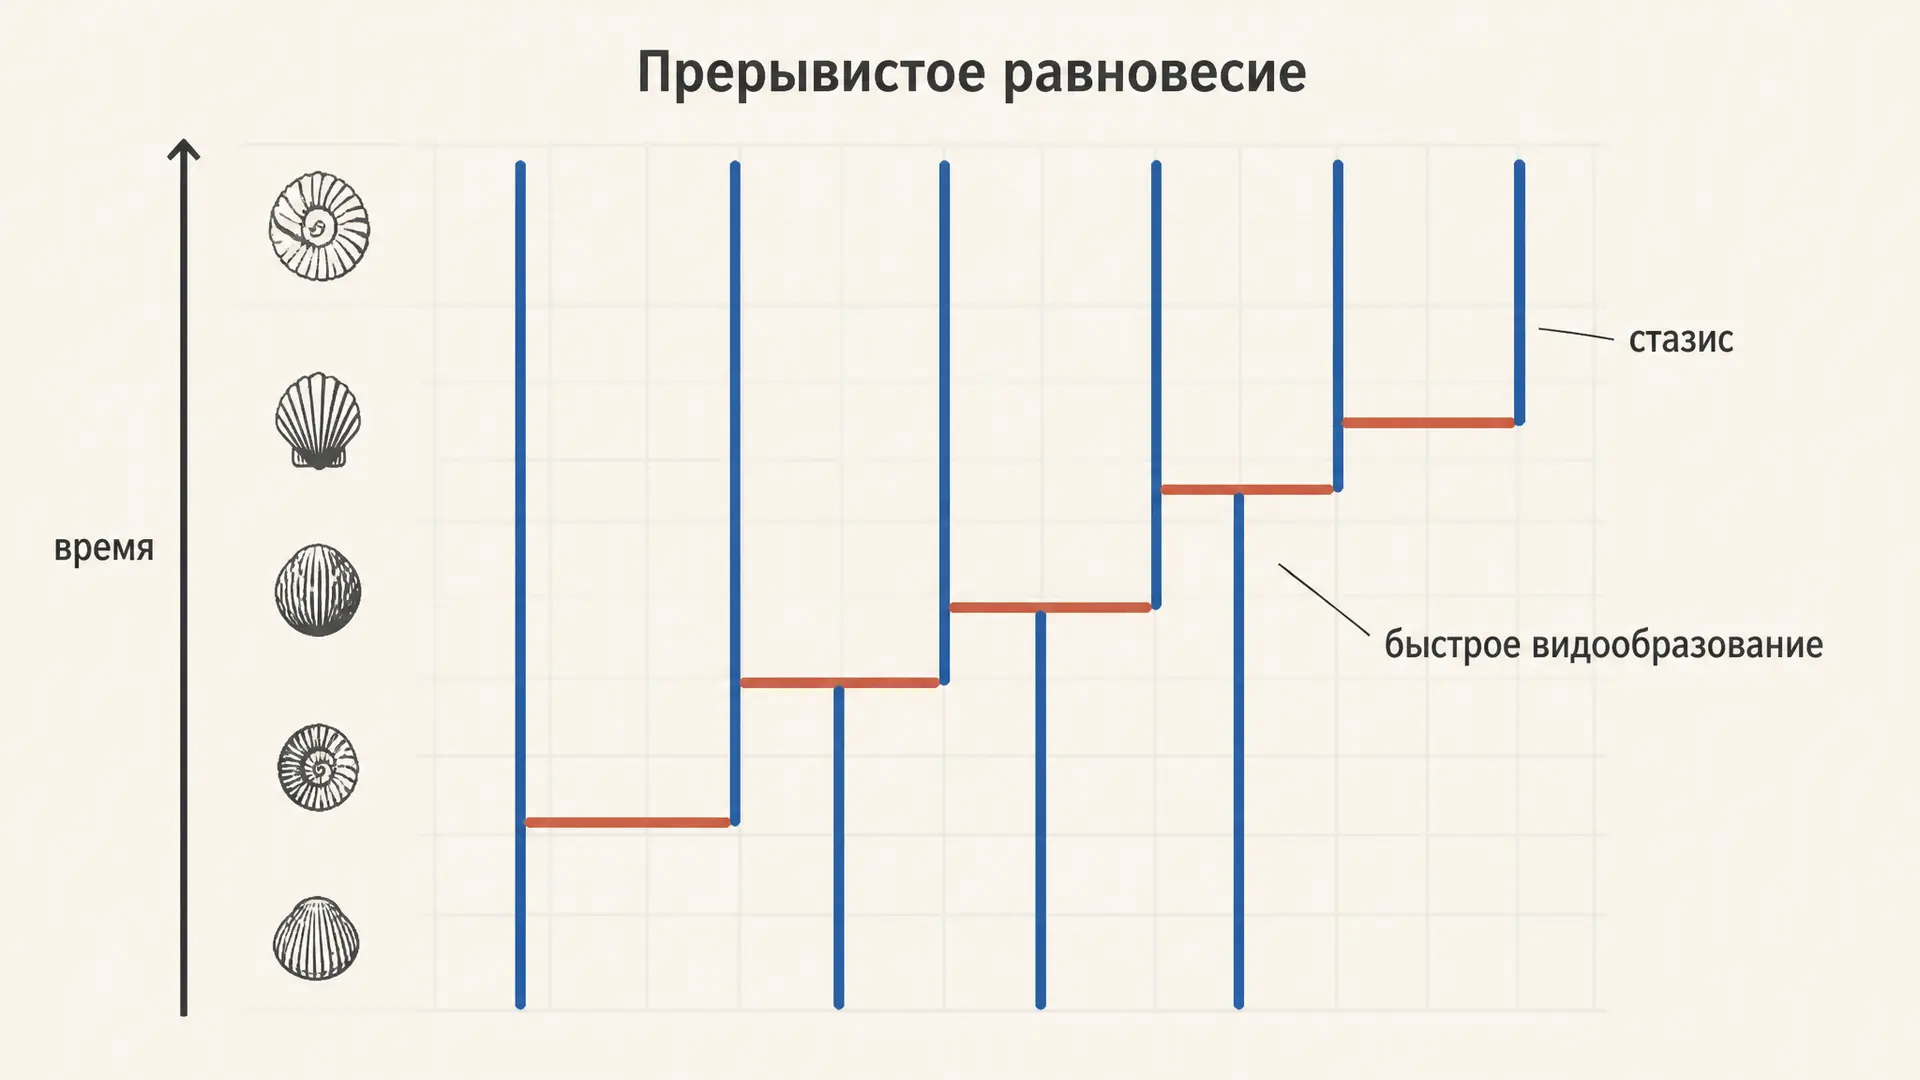
Теория прерывистого равновесия: стазис и скачки видов
Теория прерывистого равновесия Элдриджа и Гулда: почему виды миллионы лет не меняются, откуда резкие смены форм в летописи окаменелостей, что такое видовой отбор и что осталось от теории.
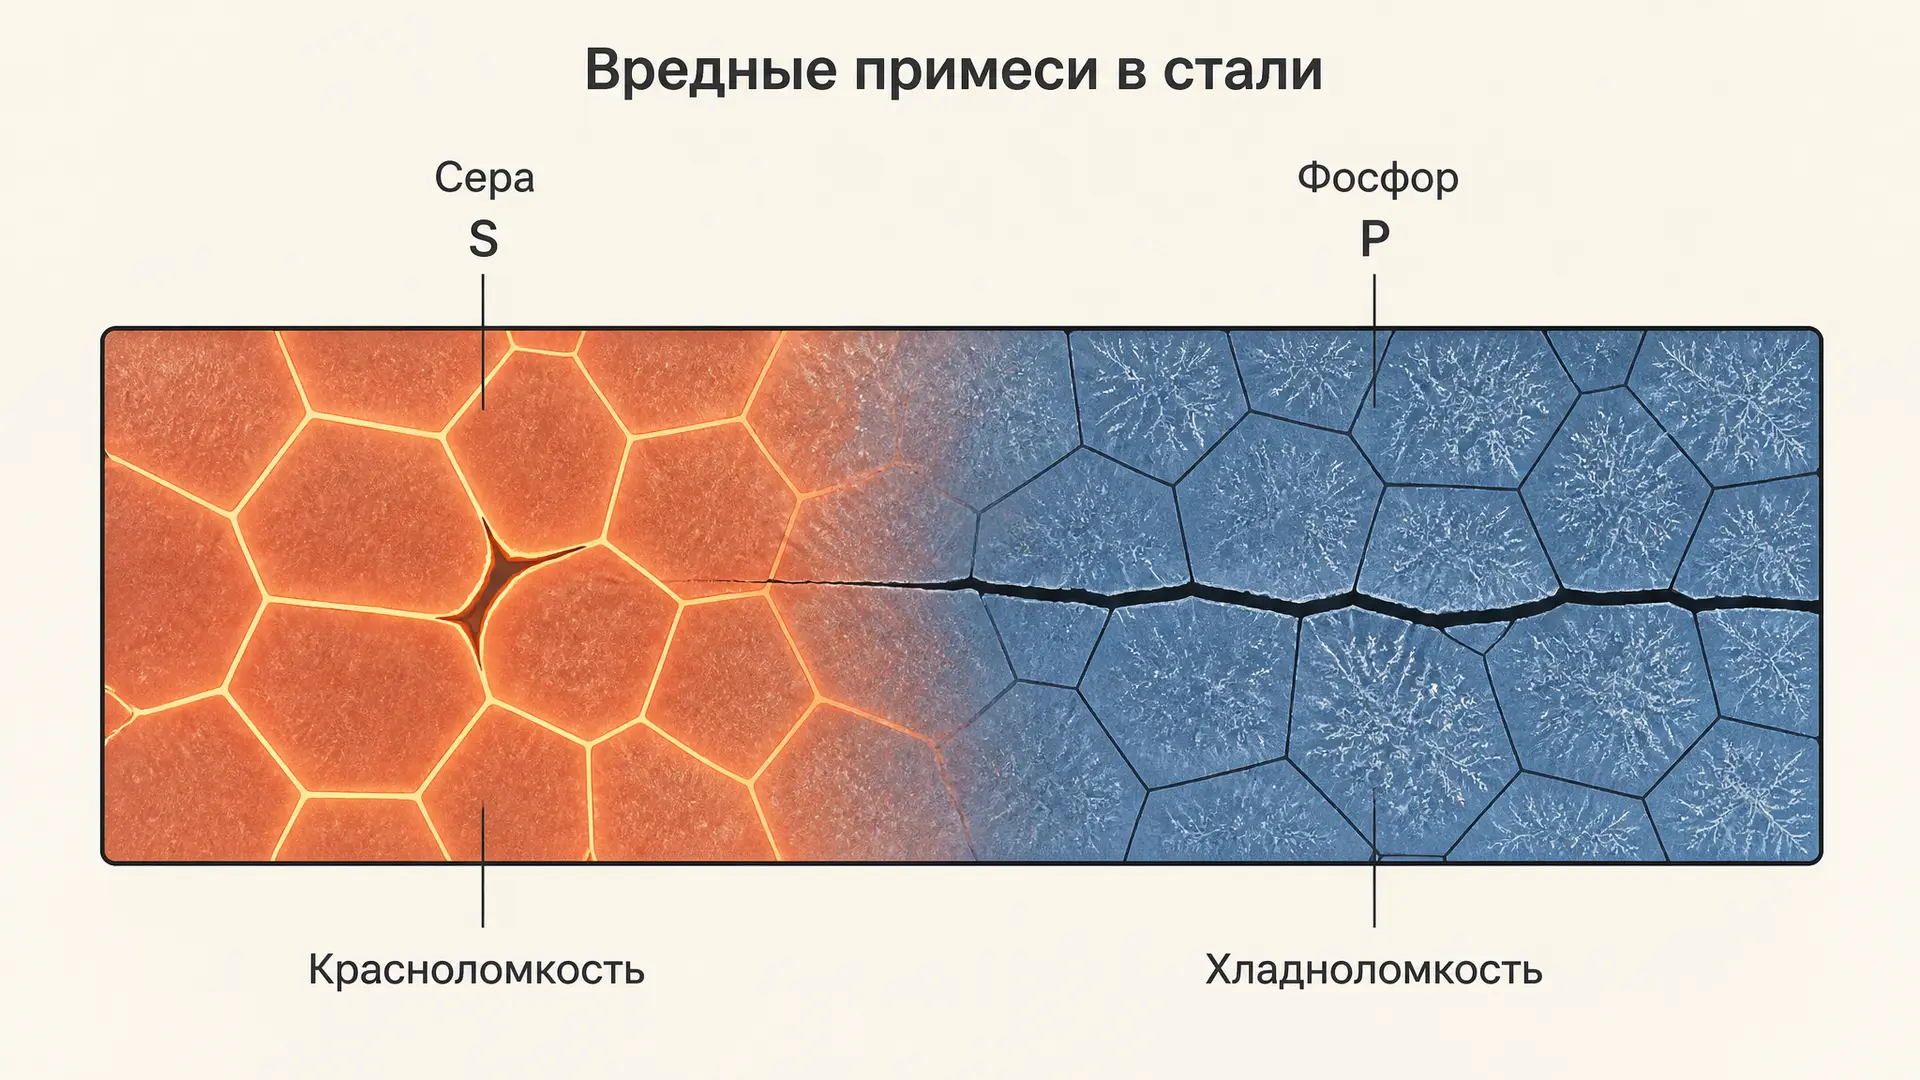
Влияние серы и фосфора на сталь: красно- и хладноломкость
Влияние серы и фосфора на сталь: почему сера даёт красноломкость, а фосфор хладноломкость, как марганец связывает серу, какие нормы у классов качества и где сера полезна.
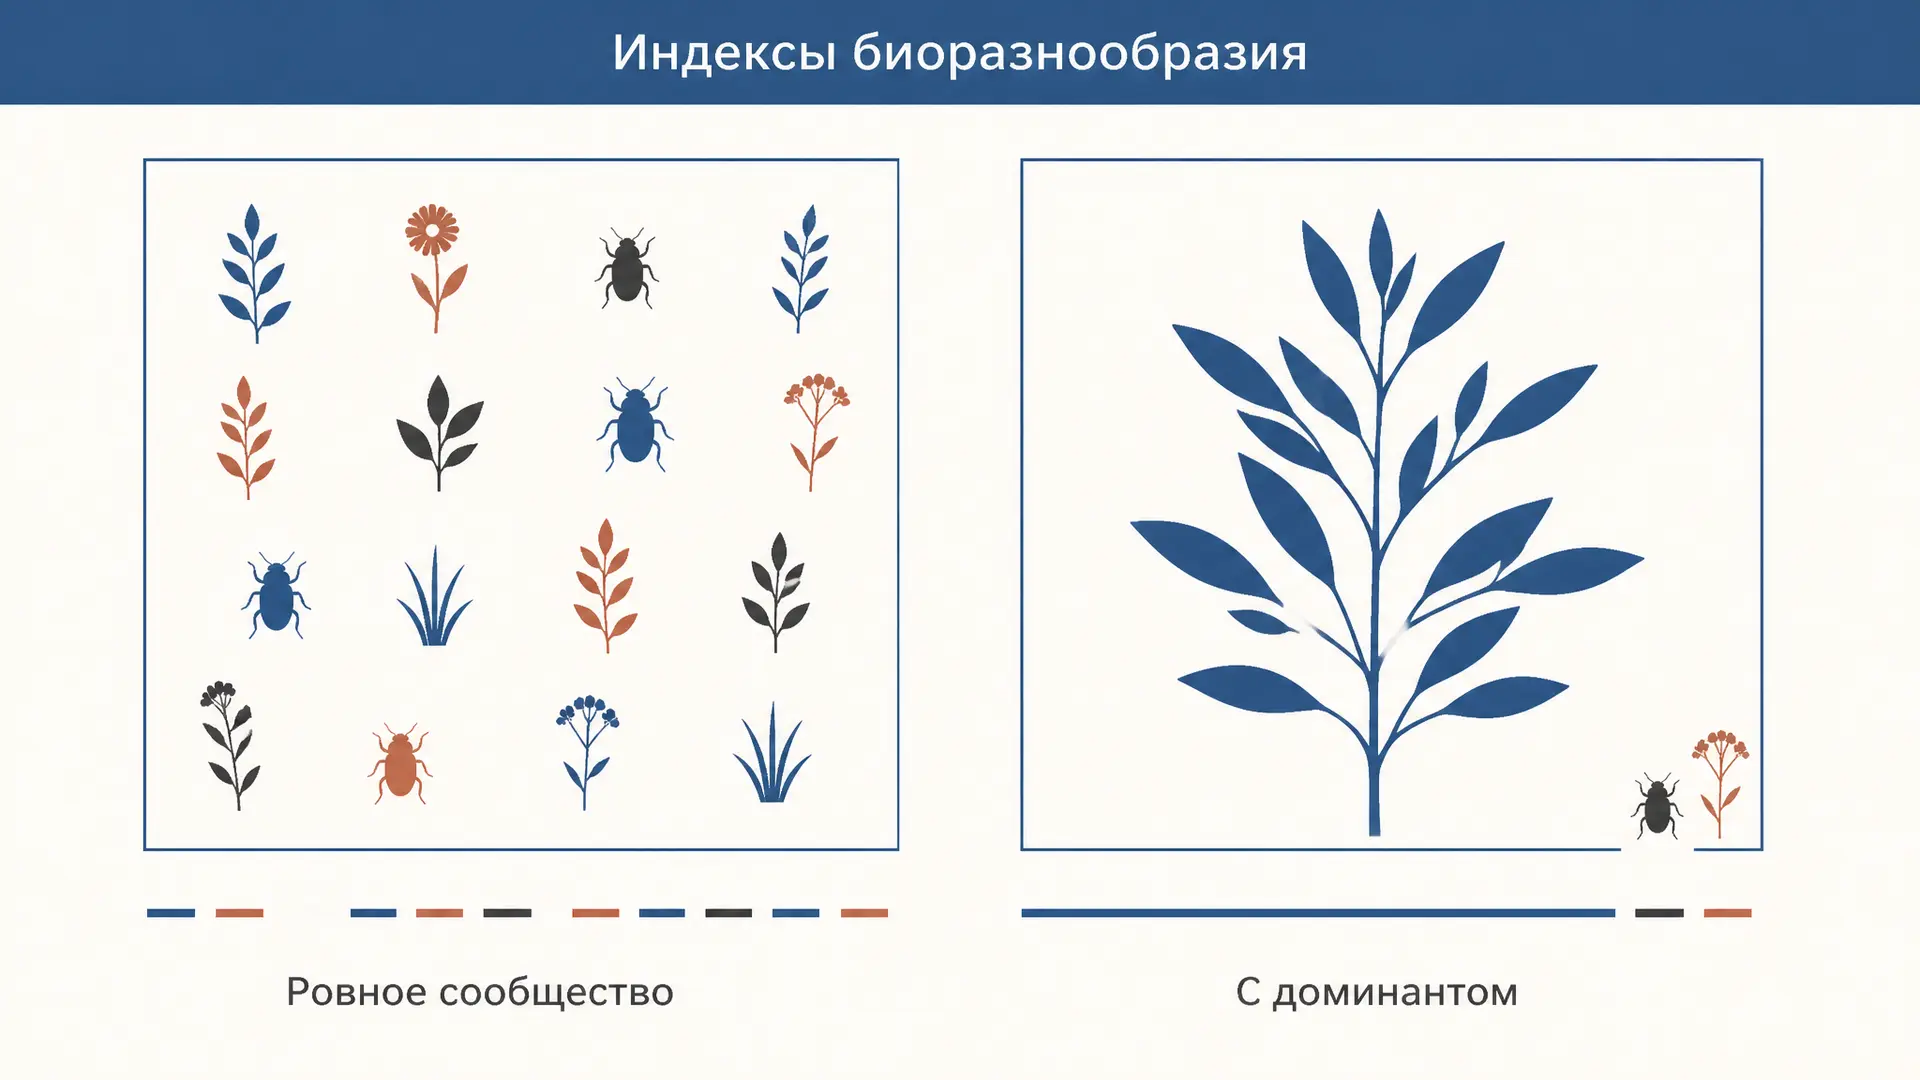
Индексы биоразнообразия: Шеннон, Симпсон, Маргалеф
Индексы биоразнообразия по шагам: видовое богатство против выравненности, формулы Шеннона, Пиелу, Симпсона и Маргалефа, альфа, бета и гамма разнообразие, кривая накопления видов.
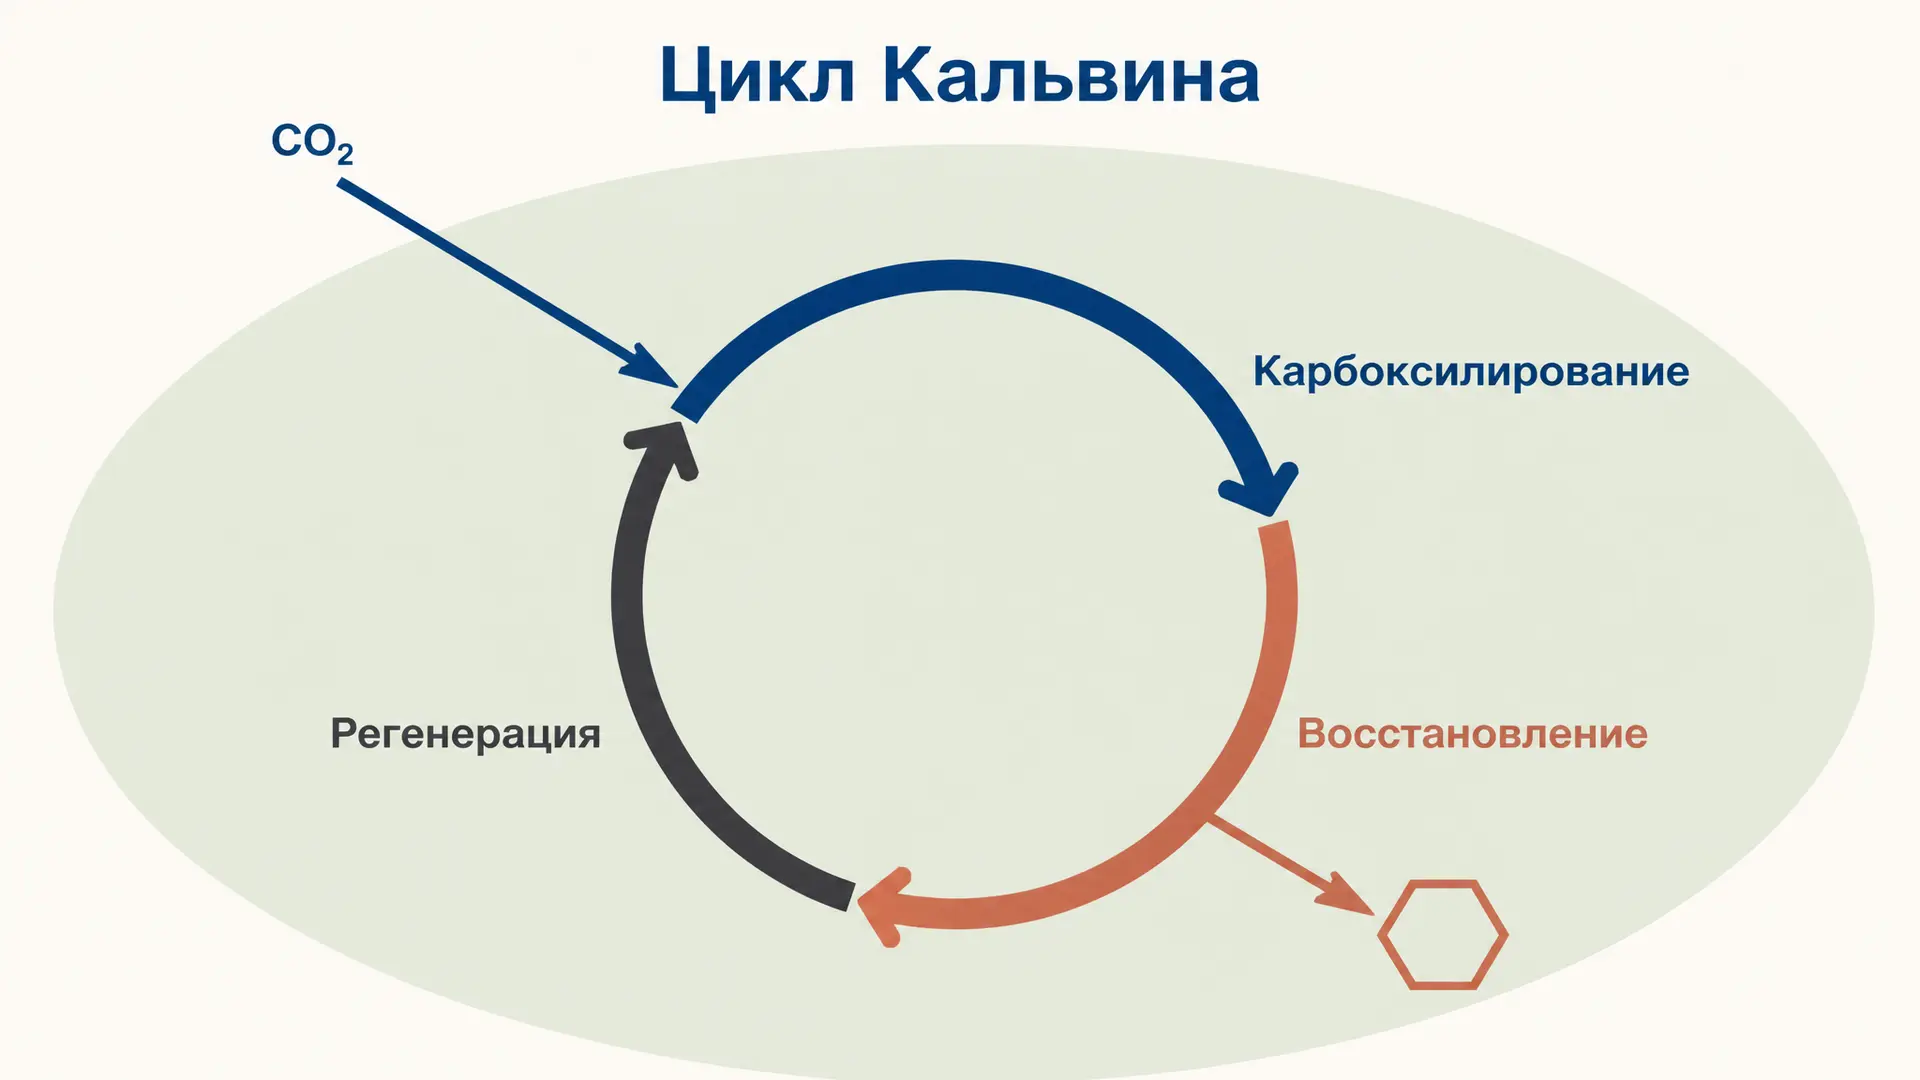
Цикл Кальвина: фиксация углерода по трём фазам
Цикл Кальвина и фиксация углерода по фазам: карбоксилирование РуБисКО, восстановление 3-ФГК, регенерация РуБФ, баланс АТФ и НАДФН, фотодыхание и история открытия.
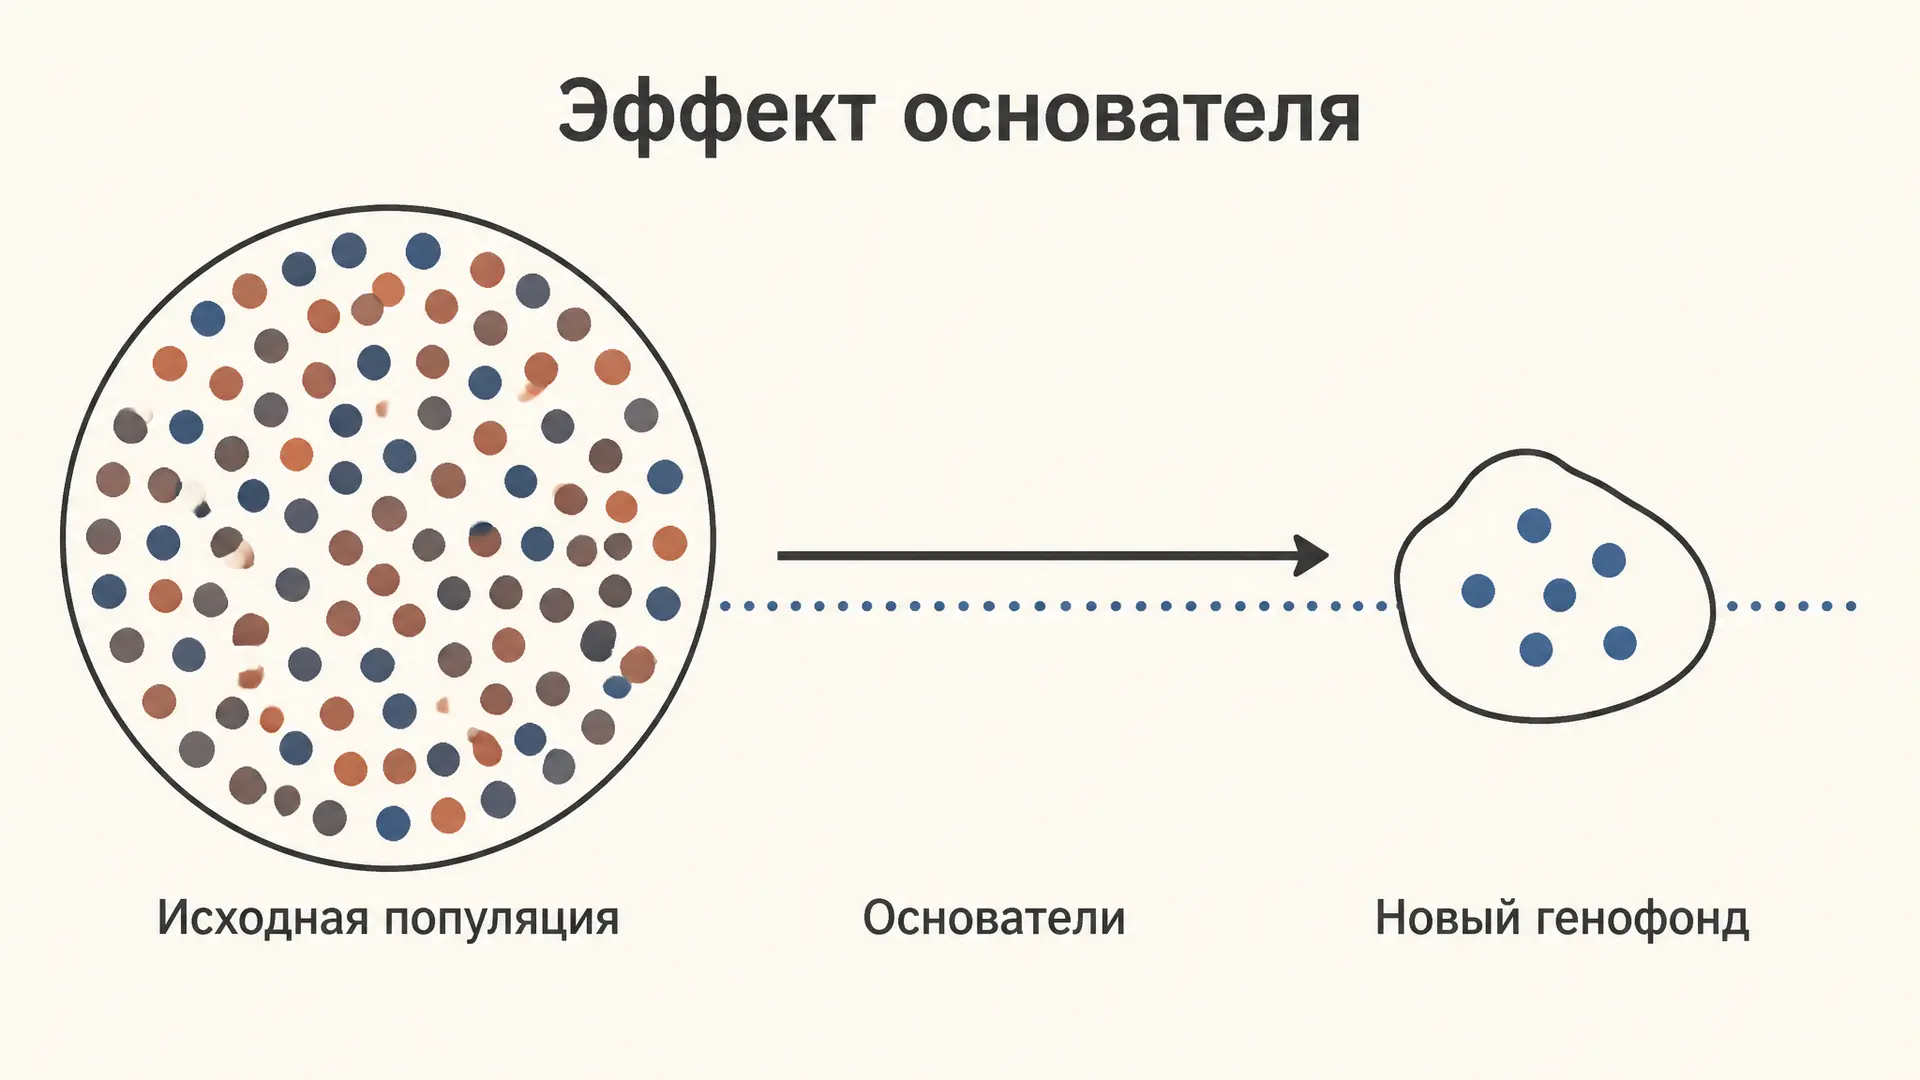
Эффект основателя: как малая группа меняет генофонд
Эффект основателя в популяции: почему горстка переселенцев смещает частоты аллелей, чем он отличается от бутылочного горлышка, как считать потерю гетерозиготности, разбор примеров.
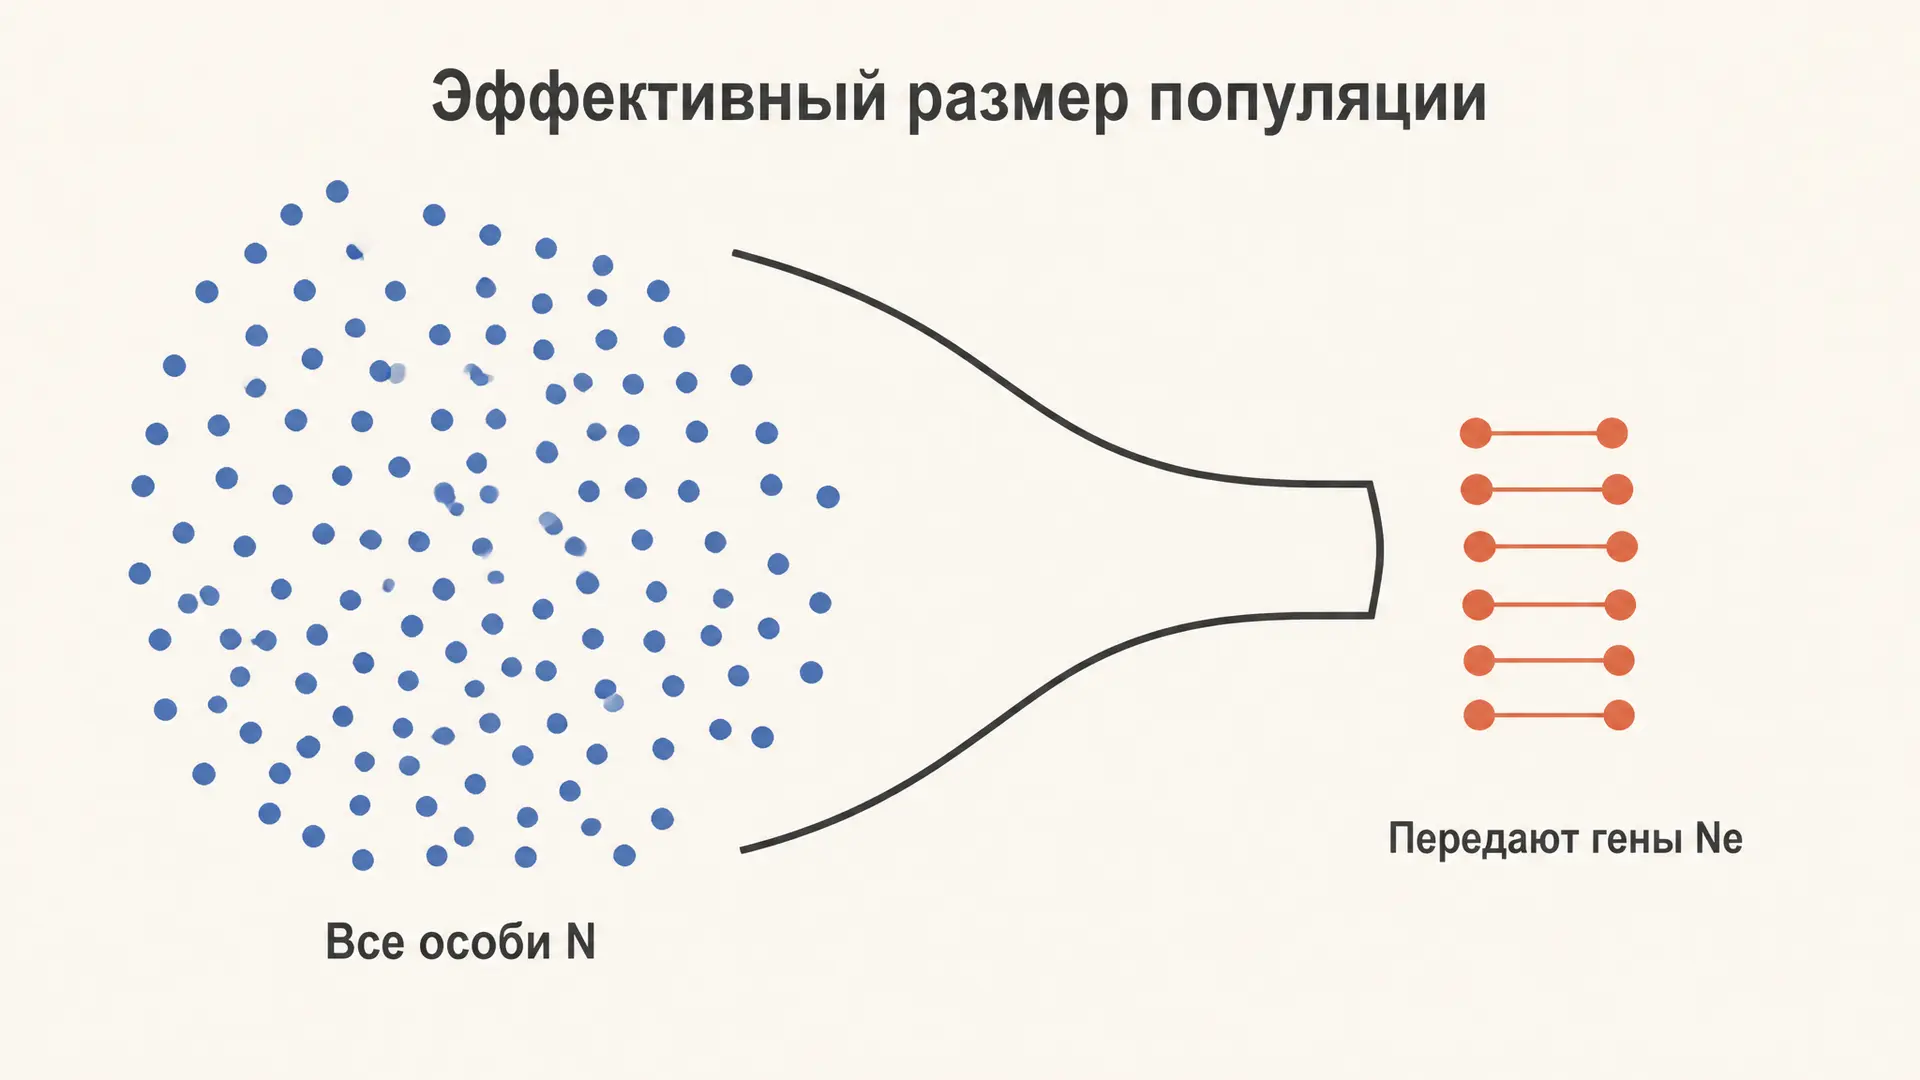
Эффективный размер популяции: почему Ne меньше N
Эффективный размер популяции Ne по Райту: формулы для соотношения полов и колебаний численности, скорость потери гетерозиготности, правило 50/500 и разбор примеров.